
Persino i tumori sanno reinventarsi, oltrepassano i confini dell’individuo, si trasformano in parassiti trasmissibili e ci costringono a ripensare i limiti e le possibilità di ciò che definiamo vita.

Generalmente, i tumori non sono considerati malattie contagiose; tuttavia, sono state documentate eccezioni sorprendenti in cui il cancro si comporta come un agente infettivo, diffondendosi tra individui attraverso il trasferimento diretto di cellule tumorali vive, anziché per mezzo di virus o trasposoni. Questi casi, noti come “tumori trasmissibili”, sono stati osservati in alcune specie animali, tra cui cani, diavoli della Tasmania, criceti siriani e alcuni bivalvi. Tali fenomeni rappresentano una significativa anomalia rispetto ai consueti modelli di sviluppo tumorale e sollevano interrogativi affascinanti sulla natura del cancro, offrendo spunti profondi di riflessione anche nell’ambito della filosofia della biologia.
Una premessa necessaria: capire il cancro per comprendere i tumori trasmissibili
Prima di addentrarci nello straordinario e, per certi versi, spiazzante fenomeno dei tumori trasmissibili abbiamo scelto, su richiesta esplicita, di dedicare un’ampia introduzione a chiarire che cos’è un tumore e come funziona, andando oltre le diffuse semplificazioni e i soliti concetti riduttivi. L’obiettivo è offrire una cornice più solida e aggiornata, che tenga conto della prospettiva evolutiva e dei dati statistici, spesso trascurati nel discorso pubblico e nella divulgazione più superficiale.
Siamo consapevoli che, per chi si avvicina per la prima volta all’argomento, questa lunga sezione introduttiva potrà risultare densa e impegnativa. Tuttavia, confidiamo che, una volta affrontata, fornirà degli strumenti essenziali per orientarsi nel tema con maggiore consapevolezza. Chi invece ha già familiarità con la biologia del cancro potrà comunque trovare spunti di riflessione utili o, se lo preferisce, potrà saltare direttamente alla sezione intitolata “Quando il cancro è una malattia infettiva”, dove inizia l’approfondimento vero e proprio sui tumori trasmissibili.
Troverete inoltre, alla fine dell’articolo, un breve glossario con alcuni termini che possono non essere scontati per chi si avvicina per la prima volta all’argomento. Quindi, se durante la lettura qualche parola vi risulta poco familiare o certi concetti non sono del tutto chiari, potete consultare queste semplici spiegazioni. Non fatevi spaventare dalla biologia, se volete approfondire ulteriormente, una qualsiasi ricerca online può sempre essere un ottimo punto di partenza.
In ogni caso, il nostro auspicio è che questa parte introduttiva non solo aiuti a ridimensionare il concetto di “cancro” e comprendere meglio le difficoltà che la ricerca scientifica affronta nel campo dell’oncologia, ma anche che riesca a trasmettere almeno una parte del fascino di questo tema. Con queste basi, ciò che seguirà -per quanto possa apparire controintuitivo- risulterà più chiaro, coerente e sorprendente.
Cos’è un tumore? un’introduzione
Tra le sfide più complesse affrontate dalla medicina e della ricerca contemporanea, quella del “cancro” occupa sicuramente un posto di rilievo; infatti in Italia rappresenta la seconda causa di morte, contribuendo a circa il 30% dei decessi (AIRC, 2024). E, sebbene i tassi di mortalità per tumore siano in diminuzione, specialmente nelle fasce di età più giovani -con alcune eccezioni (Shivshankar S, 2025)-, il numero assoluto di decessi è in aumento. Senza allarmismi, questo fenomeno è attribuibile principalmente all’invecchiamento della popolazione e alla riduzione di altre cause di morte grazie ai progressi medici. In altre parole, si tratta di una patologia la cui incidenza aumenta significativamente con l’età, e quindi la maggiore longevità della popolazione (media) comporta un incremento dei casi.
Si consiglia di approfondire l’argomento consultando il sito ufficiale dell’AIRC, in particolare la sezione “Cos’è il cancro”, che rappresenta una fonte estremamente utile e accessibile per comprendere questo tema. Per dati aggiornati, si rimanda anche alla sottosezione “Statistiche del cancro” . In alternativa, anche “Our Word in data” presenta -non solo relativamente al cancro- ottime statistiche ed approfondimenti.
Ma, senza lasciarsi ingannare dalla relativa genericità con cui abbiamo iniziato, e con cui troppo spesso se ne sente parlare; In realtà, i “tumori” rappresentano una vastissima famiglia di malattie, un fenomeno di estrema complessità che ci svela molto non solo sulla patologia e fisiologia umana, ma anche sui processi fondamentali della vita stessa, compresi quelli evolutivi.
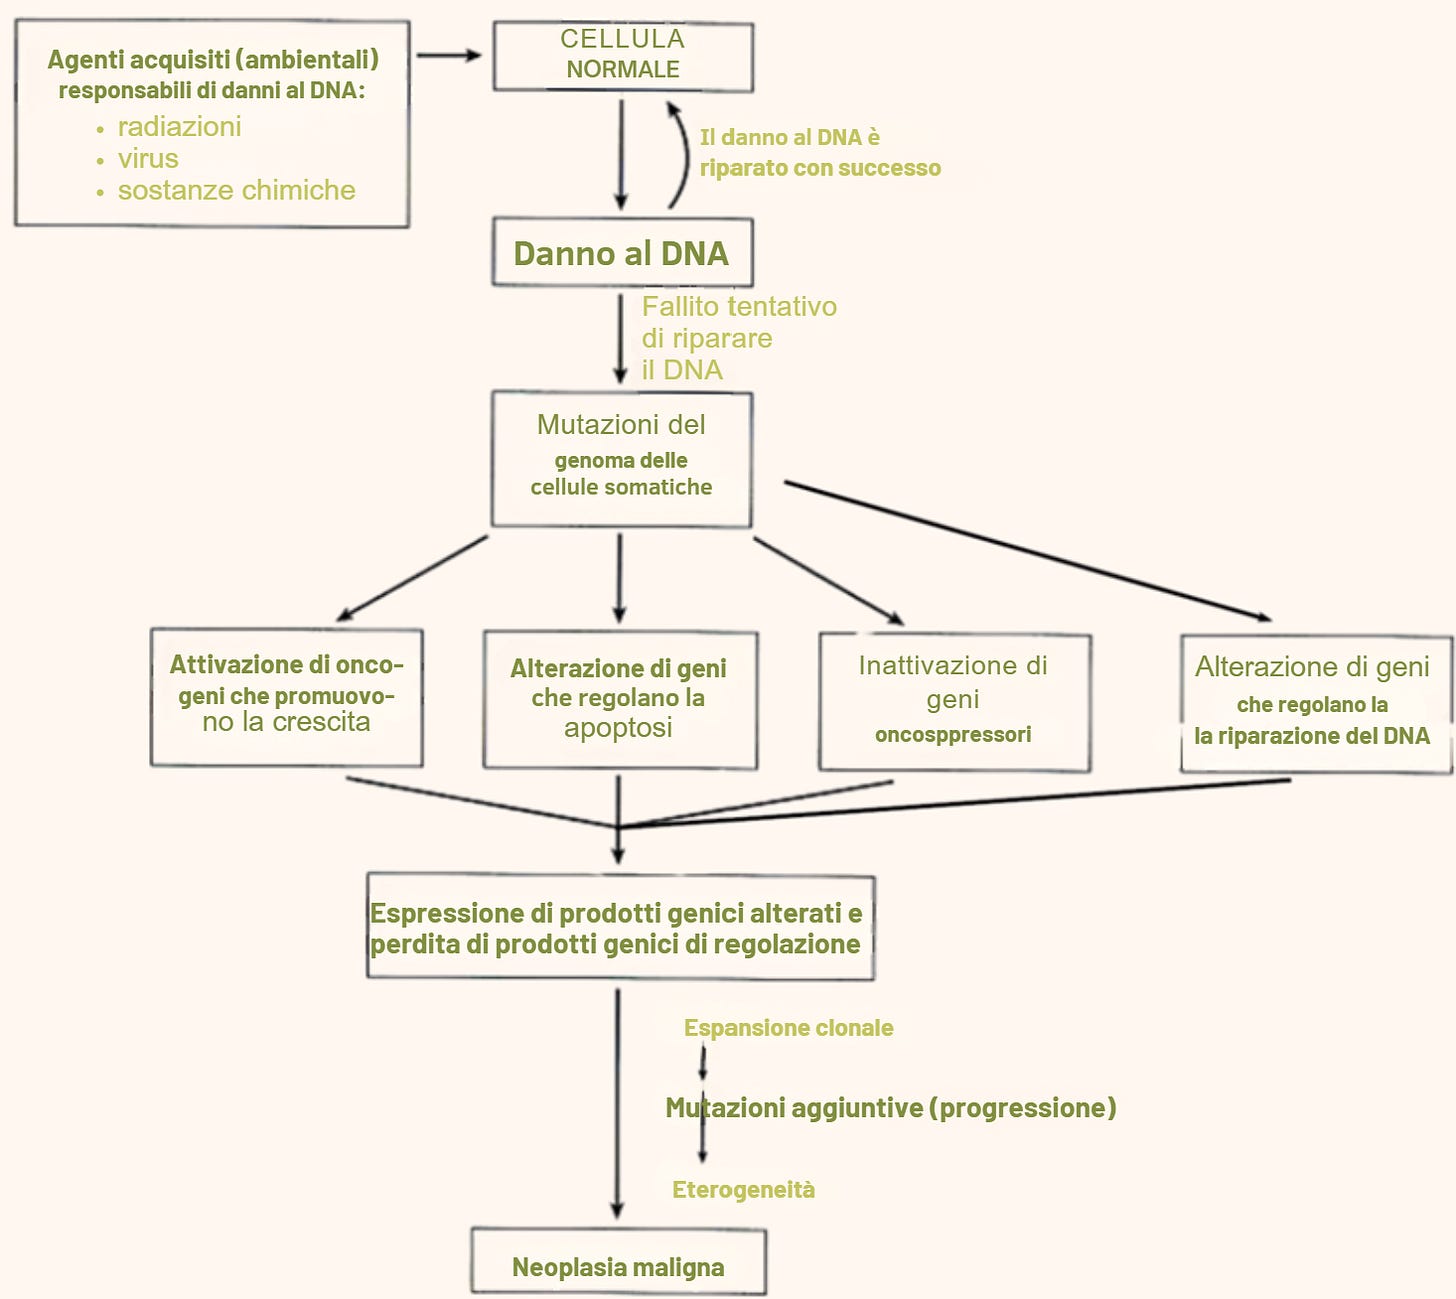
Ma quindi, che cos’è, esattamente, il cancro? Alla base, si tratta di mutazioni o alterazione di alcuni gruppi di geni rispetto al quadro fisiologico che comporta una proliferazione cellulare “incontrollata”. Nella maggior parte dei casi non è ereditaria, anche se in alcune circostanze può esserlo o possono esistere predisposizioni che aumentano il rischio di svilupparlo. Si tratta quindi di una patologia genetica prevalentemente acquisita: nasce da mutazioni che si accumulano nel DNA delle cellule somatiche nel corso della vita dell’organismo (individuo).
Nella realtà biologica, la transizione da “cellula sana” a “cellula cancerosa” non è netta ma si configura come un continuum sfumato, articolato in una serie di “step” nessuno dei quali necessariamente obbligato o universale; Questo implica che ogni tumore possa seguire un percorso patogenetico distinto, non solo tra individui diversi, ma anche all’interno dello stesso soggetto, in relazione alla sede anatomica d’origine e ad altri fattori contestuali. Quindi stabilire il momento esatto in cui una cellula, pur portatrice di mutazioni, cessa di operare in modo fisiologico e diventa patogena è estremamente complesso. Per chiarire il concetto, anche se estremamente riduttivo (vedasi “La Vita come risposta”), si può assimilare il genoma di una cellula a un sistema operativo che, con un continuo interscambio con l’ambiente esterno, decide di applicare diversi piani d’azione; alcuni sono sempre in atto, altri sono risposte indotte: quando questo centro subisce alterazioni critiche, il programma funzionale della cellula viene compromesso; così, geni normalmente silenziati possono essere inappropriatamente espressi, mentre altri essenziali per il controllo del ciclo cellulare cessano di funzionare. Il risultato è una proliferazione cellulare disregolata e potenzialmente incontrollata, che rappresenta l’elemento cardine dell’oncogenesi.
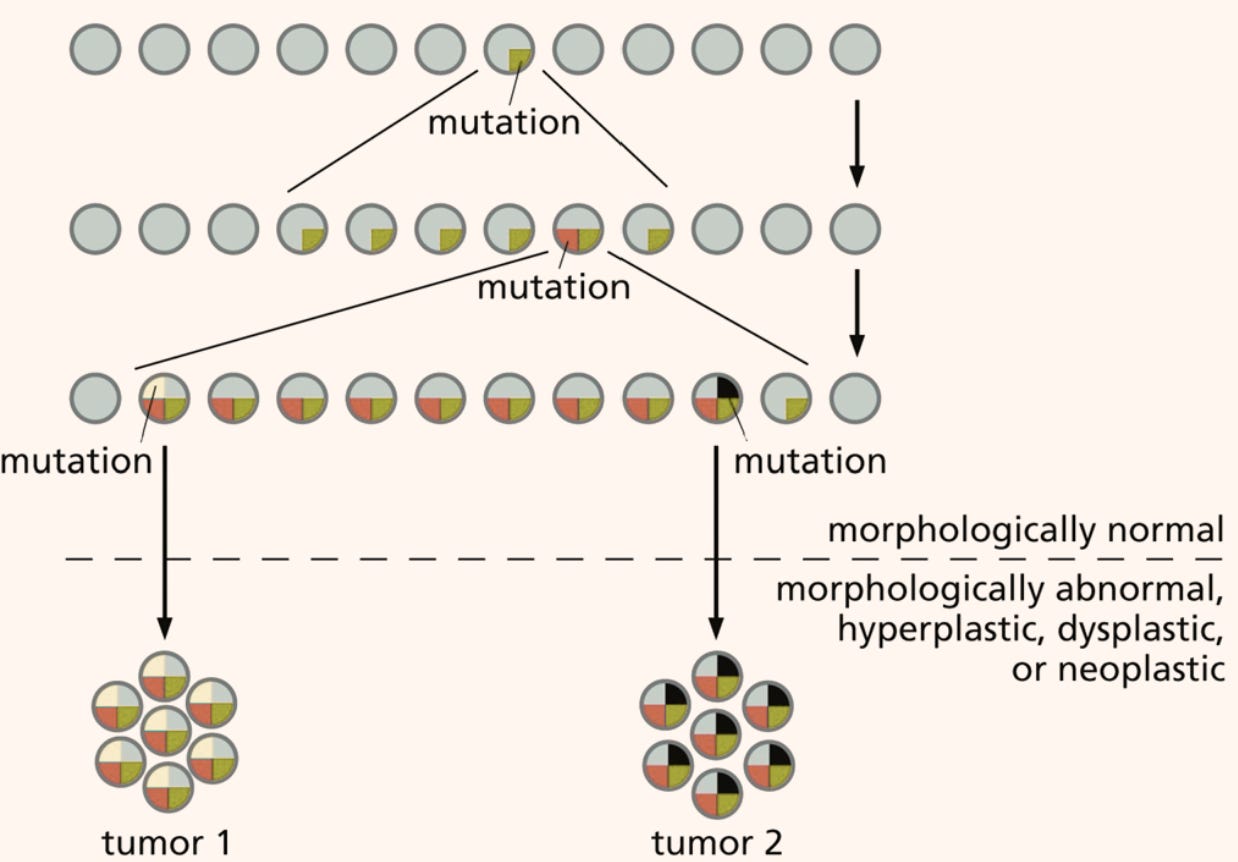
È importante ribadire però che una singola mutazione non è sufficiente a causare un tumore. Affinché questo si sviluppi, devono avvenire numerosi eventi genetici, in un processo che richiede tempo e condizioni favorevoli (si consiglia la lettura dell’articolo di Alison Spodek), motivo per cui l’incidenza dei tumori maligni sale con il crescere dell’età. Ogni giorno, nel genoma di ciascuna delle nostre cellule, si verificano migliaia di danni (o milioni a seconda dello stile di vita, per esempio l’esposizione al sole, l’alimentazione, il lavoro etc..). Fortunatamente, la stragrande maggioranza di questi viene prontamente riparata grazie a sofisticati meccanismi di controllo interni o cade in porzioni del DNA non importanti. La refrattarietà e la relativa rarità del cancro, rispetto all’enorme quantità di danni potenziali, testimonia l’efficienza e la resilienza del nostro sistema biologico; ma anche la difficoltà di soddisfare in contemporanea una serie di mutazioni favorevoli alla proliferazione (non a caso i primi geni delicati sono proprio quelli dedicati al riparo dei danni al genoma).
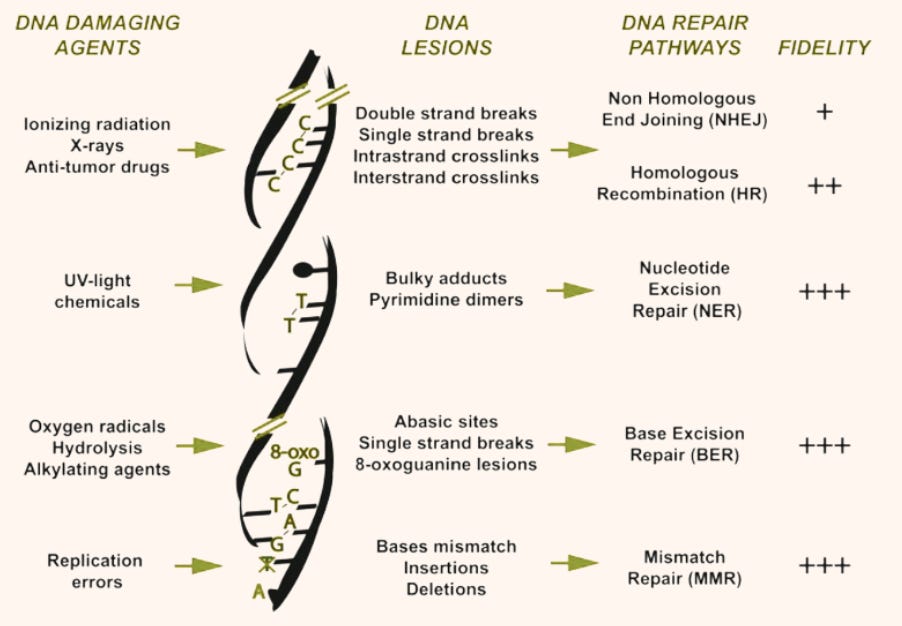
Alla luce di quanto esposto, è facile dedurre che il termine “tumore” -che per maggiore accuratezza, d’ora in avanti sarà sostituito da “neoplasia”-, pur evocando nell’immaginario comune l’idea di una condanna ineluttabile, descrive in realtà una condizione fisiologicamente frequente, intrinsecamente eterogenea e, in un certo senso, statisticamente probabile.
Nel nostro organismo è “normalmente” presente una grande varietà di cellule con caratteristiche atipiche, incluse formazioni neoplastiche a comportamento benigno, talvolta prossime all’acquisizione di mutazioni potenzialmente pericolose. Alcune di queste proliferano localmente ma non infiltrano i tessuti adiacenti né, soprattutto, sviluppano capacità metastatiche. È del tutto normale, considerando l’enorme numero di cellule -circa 30 trillioni- che alcune di esse possono deviare dal loro stato funzionale fisiologico (Normale). Tuttavia, a livello sistemico, l’omeostasi globale viene comunque mantenuta grazie alla ridondanza, alla regolazione genica e alla selezione cellulare operata dall’organismo; nonché anche dalla sorveglianza immunitaria e da altri meccanismi di controllo intracellulare.
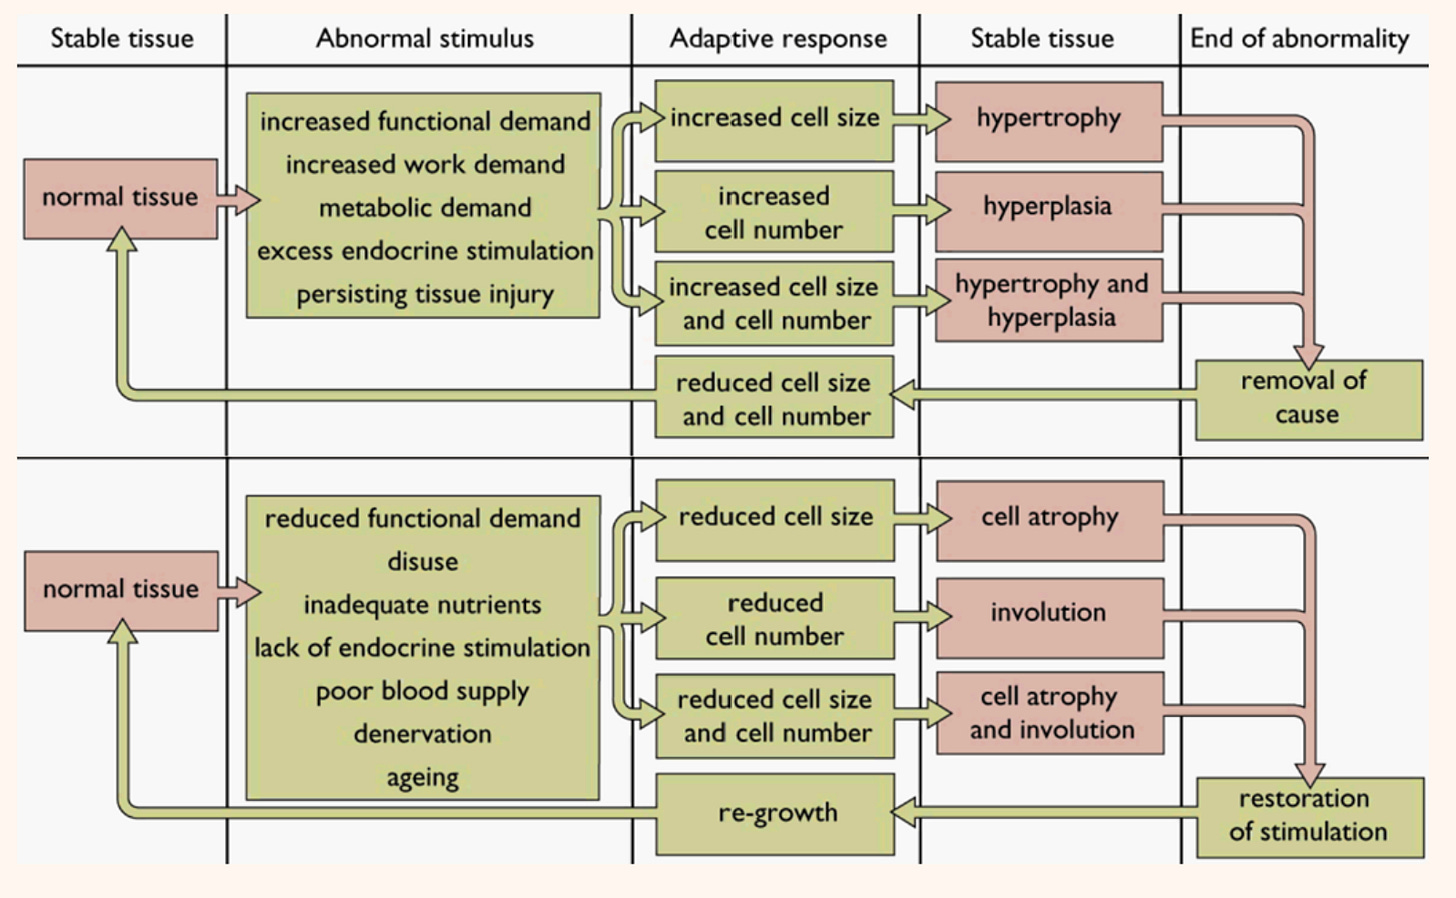
Ancor prima di parlare dello sviluppo di una neoplasia conclamata, esistono numerose condizioni di alterazione cellulare e tissutale che rappresentano manifestazioni precoci di adattamento patologico o di crescita anomala. È il caso dell’iperplasia, dell’atrofia, della metaplasia (come nell’esofago di Barrett, precursore dell’adenocarcinoma esofageo), o degli adenomi/polipi intestinali. Queste condizioni, frequentemente associate a fattori ambientali, non configurano un tumore maligno invasivo, ma possono rappresentare tappe intermedie nel processo di trasformazione neoplastica.
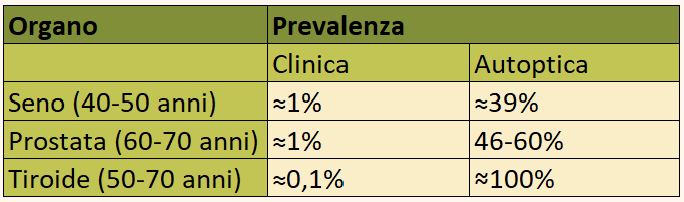
Mentre quando si passa invece a parlare di neoplasie vere e proprie, i dati suggeriscono una realtà meno drammatica di quanto comunemente percepito: virtualmente tutti gli individui, in età avanzata, muoiono con almeno una neoplasia tiroidea latente -autoptica- (Black; 1993); allo stesso modo, più uomini muoiono con un carcinoma prostatico che a causa di esso (Powell;2010). Dunque, non sempre la sola presenza del tumore equivale alla sua responsabilità nella causa di morte, confondere questi due aspetti alimenta un fraintendimento comune.
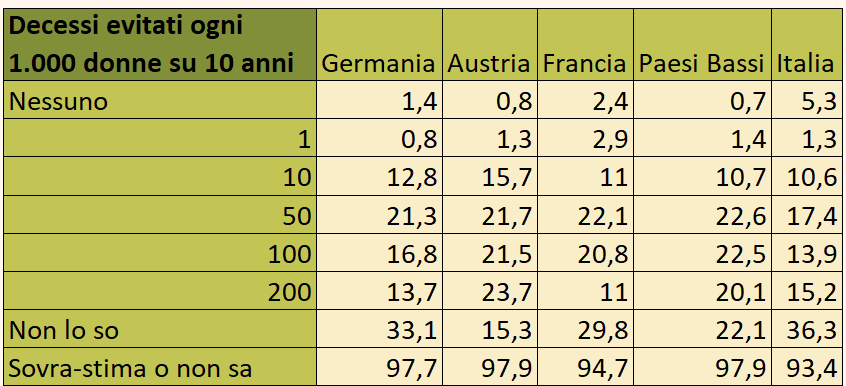
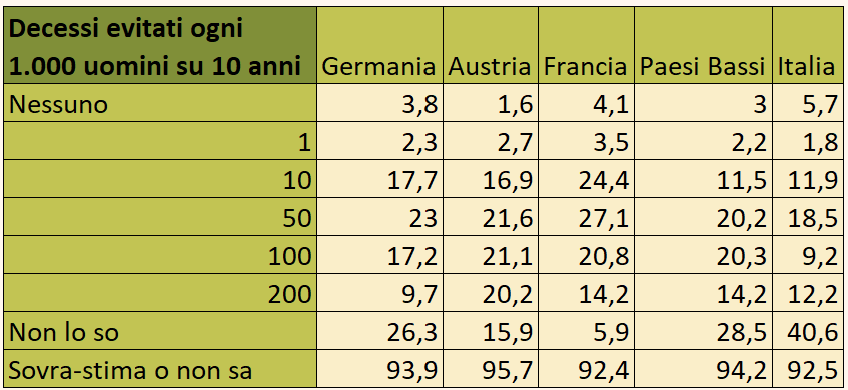
Questo errore concettuale si riflette anche nella comunicazione della medicina preventiva. L’esempio dello screening mammografico è emblematico: il cosiddetto “paradosso di Simpson” descrive una situazione in cui la diagnosi precoce non determina un miglioramento proporzionale della sopravvivenza. Secondo dati aggregati (Gigerenzer; 2009; Cochrane; 2013), su 2.000 donne sottoposte a screening, solo una vedrà la propria vita prolungata dopo dieci anni, mentre circa dieci riceveranno trattamenti per un tumore che non avrebbe mai avuto rilevanza clinica nel corso della loro vita.
Il rischio qui non è solo di “sovradiagnosi”, ma di “overtreatment”: si crea un’illusione di efficacia che non si traduce in una riduzione concreta della mortalità. Confondere diagnosi precoce con prevenzione efficace è un errore logico, ma soprattutto epidemiologico.
Lo stesso vale per il test del PSA nella diagnosi del carcinoma prostatico: è in grado di individuare neoplasie silenti, ma in assenza di una terapia realmente risolutiva, non si osserva un aumento significativo della sopravvivenza. Inoltre, il test produce un alto numero di falsi positivi, con tutte le conseguenze psicologiche, cliniche e iatrogene del caso. A fronte di 154 uomini diagnosticati, solo 24 muoiono effettivamente per quel cancro, mentre gli altri moriranno, per altre cause, con il cancro (Cochrane; 2013).
Selezione naturale
Le neoplasie maligne -quello caratterizzate da invasività tissutale e capacità metastatica-, pur essendo la forma clinicamente più pericolosa, rappresenta un evento statisticamente raro se valutato a livello della singola cellula. Considerando che durante l’arco della vita si verifichino complessivamente oltre 10¹⁶ eventi replicativi, sommate alle 30 trilioni di cellule del’organismo, per forza di numeri, sorgono innumerevoli opportunità per l’accumulo di mutazioni. Da un punto di vista probabilistico, è quasi inevitabile che alcune cellule acquisiscano, nel tempo, combinazioni di alterazioni genetiche capaci di conferire loro alcune delle proprietà distintive (che vedremo tra poco) del fenotipo neoplastico.
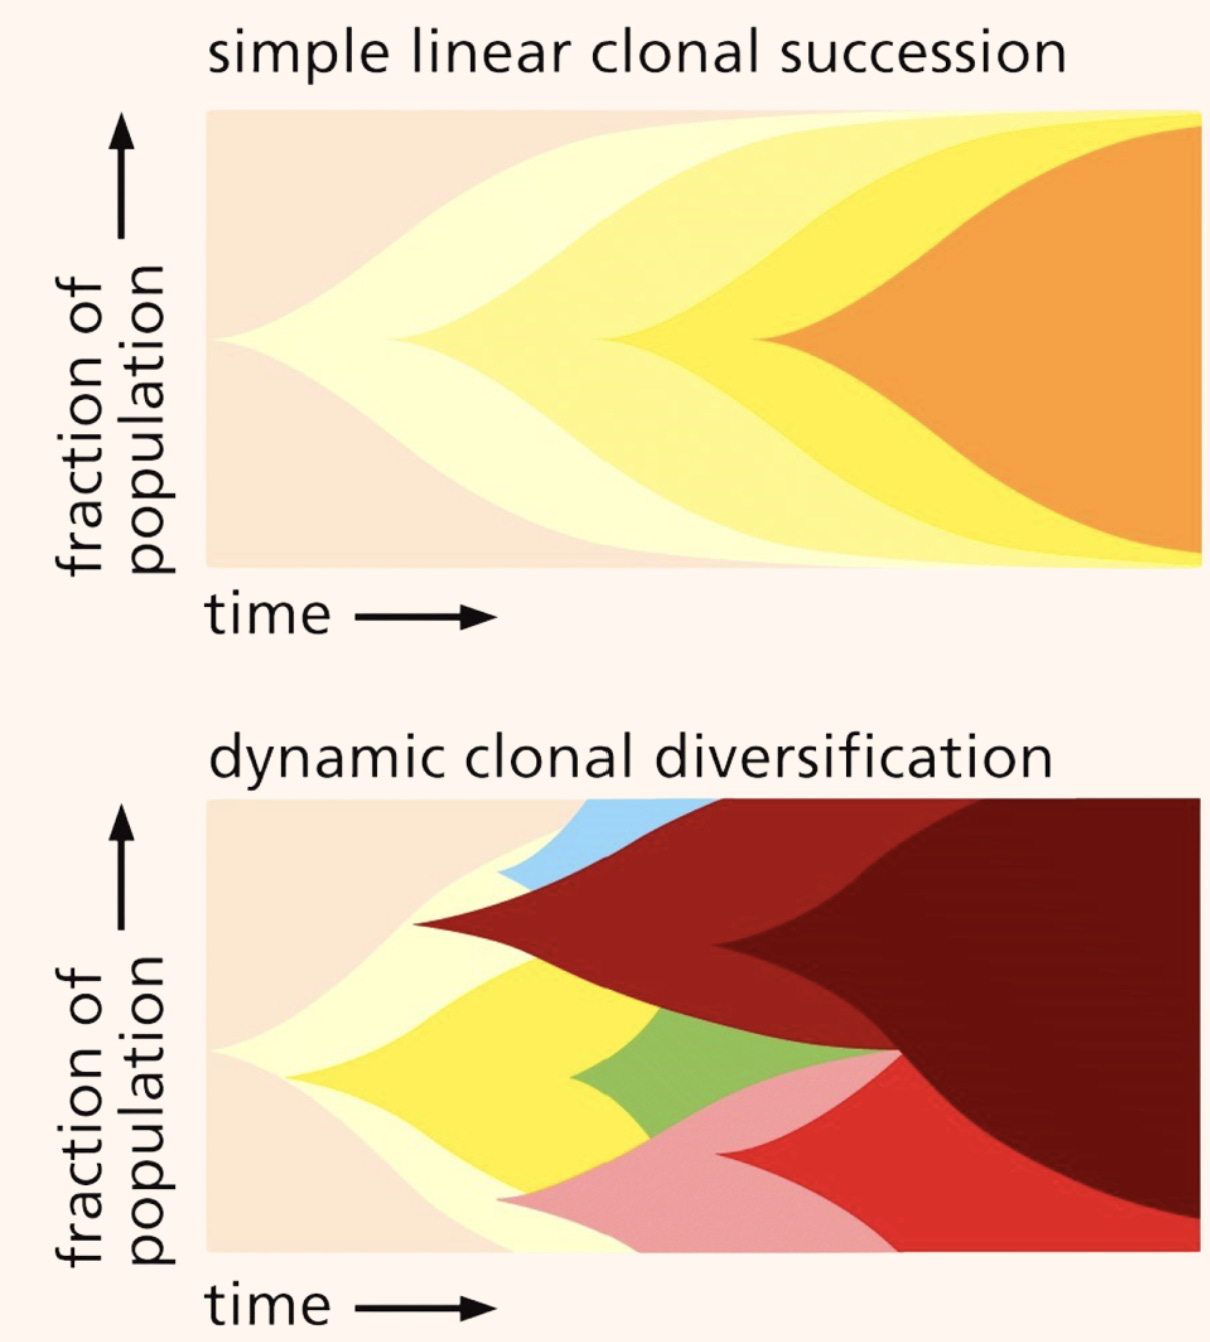
Un punto cruciale già fatto intendere è l’aspetto evolutivo del cancro. Le cellule all’interno di un tumore non sono tutte uguali; c’è una notevole eterogeneità intratumorale alimentata dall’instabilità genomica. Quindi, su queste popolazioni eterogenee agisce una vera e propria selezione Darwiniana. Semplificando, i cloni cellulare che acquisiscono mutazioni che conferiscono loro un vantaggio (maggiore proliferazione, evasione immunitaria, resistenza alle terapie) prevalgono e si espando, portando a un’evoluzione del tumore verso una maggiore aggressività.
Fondamentale in questo processo è quindi il concetto di accumulo ereditario delle mutazioni: come nei processi evolutivi, anche per i tumori vale il principio del “palinsesto”, per cui ogni mutazione vantaggiosa per la sopravvivenza e la proliferazione cellulare viene conservata e trasmessa alle cellule figlie. In questo senso, l’evoluzione tumorale è un processo darwiniano in miniatura, dove mutazioni casuali si combinano con la selezione clonalmente positiva.
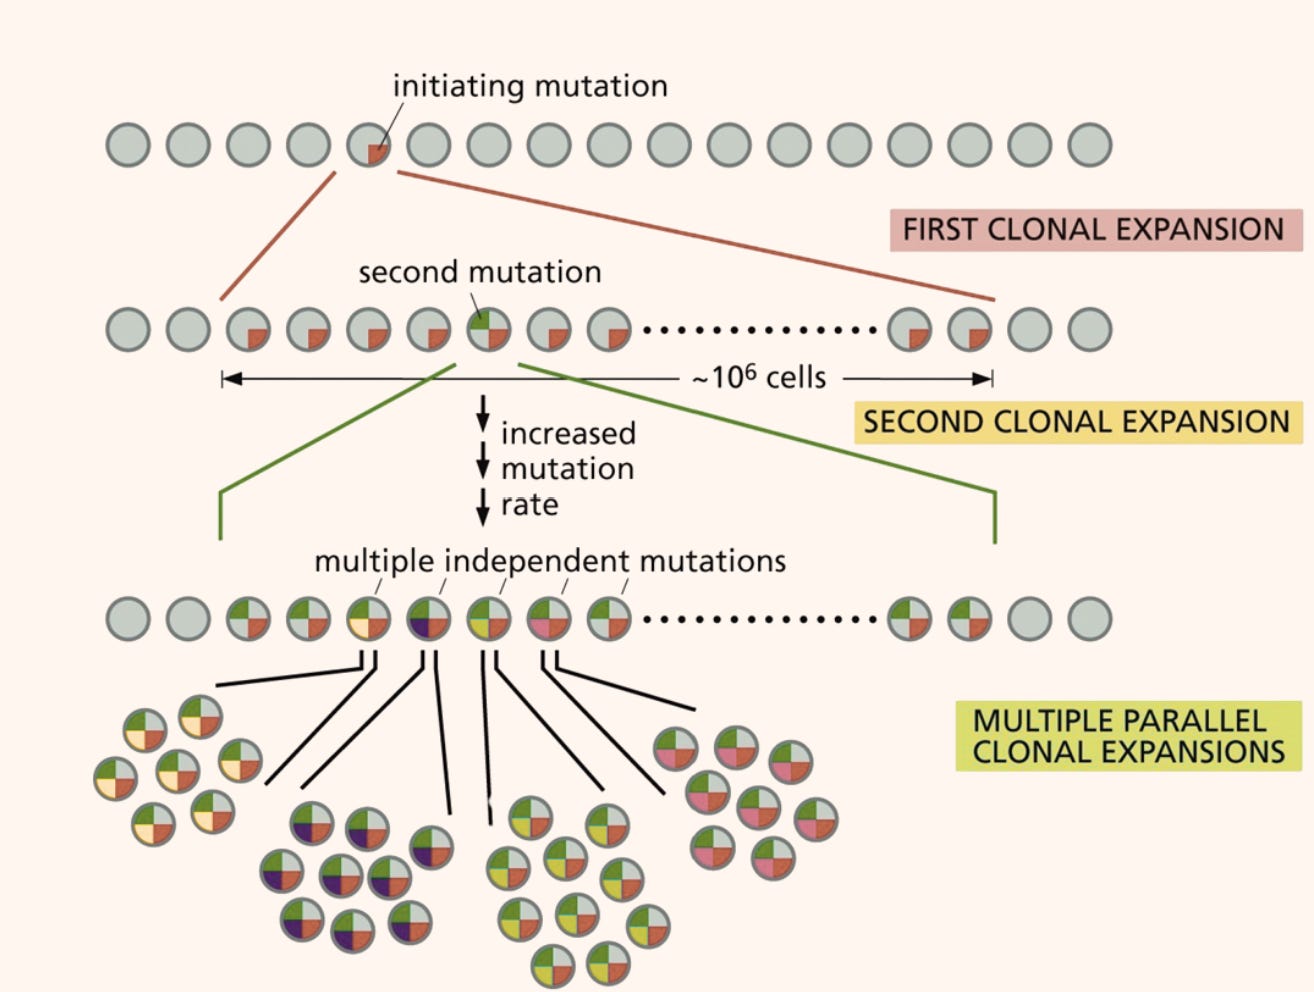
I tumori possono quindi essere considerati come ecosistemi cellulari altamente dinamici, composti da popolazioni eterogenee in competizione per risorse e spazio. Questa selezione intra-tumorale favorisce i cloni più adatti ed adattabili; comportando spesso la resistenza alle terapie e rendendo il trattamento oncologico particolarmente arduo. L’eterogeneità genetica e fenotipica del tumore, unita alla sua plasticità evolutiva, costituisce la principale barriera alla realizzazione di una “cura definitiva” contro il cancro.
Tuttavia, il fatto che non sviluppiamo tumori maligni in continuazione è dovuto a una rete straordinariamente efficiente di sistemi di controllo e difesa…. Senza entrare nel dettaglio, questi includono meccanismi molecolari di riparazione del DNA, geni oncosoppressori che bloccano la proliferazione o inducono una morte programmata (apoptosi) nelle cellule danneggiate, l’accorciamento dei telomeri (estremità dei cromosomi che non contengono informazione genica, non proteogenici) che limita il numero di divisioni cellulari, una costante sorveglianza immunitaria e la selezione naturale stessa a livello cellulare e generazionale.
Solo quelle rare cellule che, per accumulo di mutazioni ed eventi epigenetici, riescono ad evadere tutti questi controlli e a superare le barriere sopra citate, hanno la possibilità di proliferare incontrollatamente e, attraverso ulteriori selezioni e acquisizione di “hallmarks” (segni distintivi dei tumori), dare origine a un tumore clinicamente rilevante e maligno. Questo sottolinea l’eccezionalità statistica (sebbene non assoluta) dell’evento “tumore maligno” rispetto all’enorme numero di processi potenzialmente tumorigenici che vengono bloccati dal nostro corpo giornalmente.
Resistenze e predisposizioni nei vertebrati
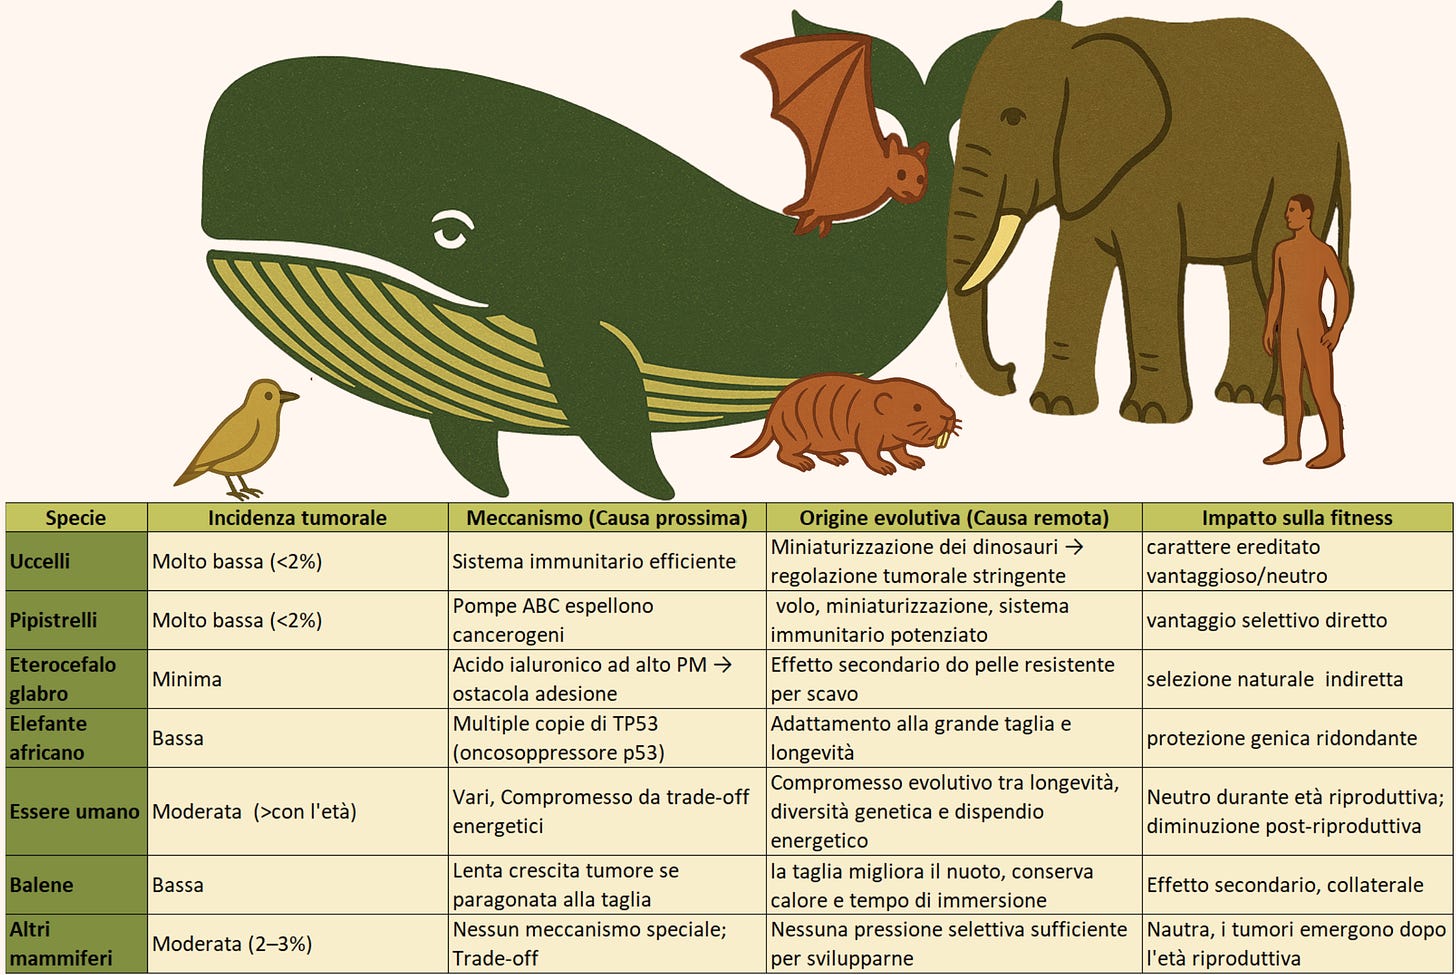
le predisposizioni neoplastiche, quando non recessive e prive di impatto (quindi oltre l’età riproduttiva), riducono la fitness individuale – capacità di un organismo di sopravvivere, riprodursi e trasmettere i suoi geni alla generazione successiva-. Per questo, alcuni animali, come uccelli, pipistrelli e l’eterocefalo glabro, hanno adattato delle speciali strategie difensive infrangendo la soglia del 2-3% di incidenza tumorale presente generalmente nel regno animale.
Negli altri animali, esseri umani inclusi, si è instaurato un equilibrio evolutivo -un trade off- tra il costo energetico necessario per contrastare lo sviluppo delle neoplasie e il beneficio derivante dal mantenimento della variabilità genetica, anche attraverso il favorimento di mutazioni casuali nei gameti. Questo compromesso non compromette significativamente la fitness riproduttiva, portando i tumori a manifestarsi tendenzialmente in età avanzata, cioè oltre il picco riproduttivo, rendendo così ininfluente la loro presenza alla selezione naturale. Sul tema della refrattarietà alla mutazione e alla variabilità genetica, si consiglia la lettura del nostro approfondimento sul caso di Deinococcus radiodurans (definito come “batterio Conan”), un batterio straordinariamente efficiente nella riparazione del DNA, che rappresenta un’estrema – e inapplicabile- eccezione a queste dinamiche nei metazoi.
Un altro principio evolutivo ben documentato è il seguente: all’aumentare delle dimensioni corporee e della longevità , cresce in modo proporzionale la necessità di meccanismi antineoplastici sofisticati ed efficienti. Questa esigenza si fonda su basi statistiche e biologiche. Infatti un organismo di maggiori dimensioni contiene un numero superiore di cellule, e una vita più lunga implica un maggior numero di cicli di replicazione cellulare -entrambi fattori che incrementano la probabilità cumulativa di mutazioni oncogeniche. Questa correlazione è valida sia dal punto di vita interspecifico che intraspecifico. Infatti anche nella nostra specie i dati epidemiologici (Green J; 2011) indicano che, a parità di altri fattori, gli individui più alti presentano un rischio aumentato di sviluppare tumori.
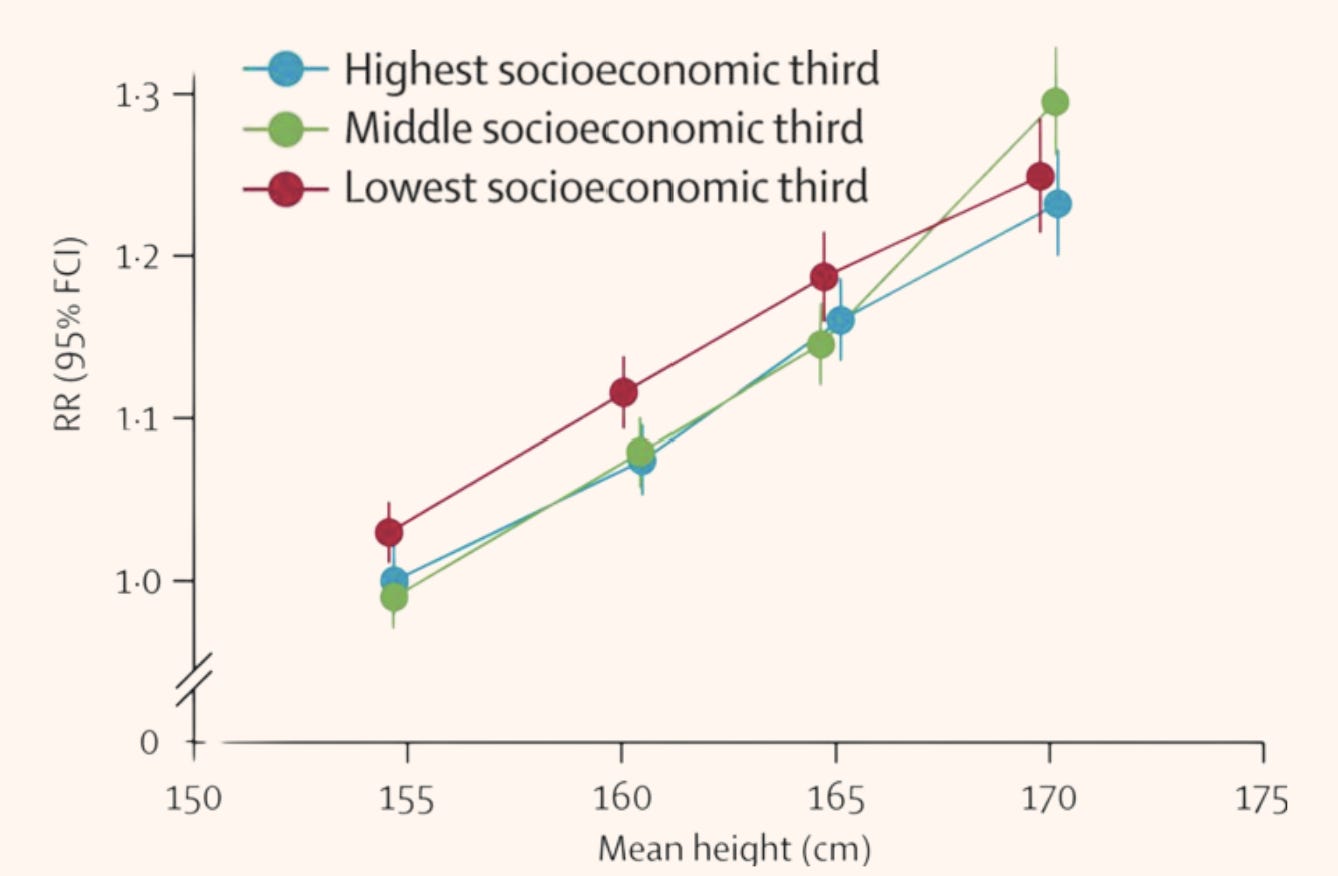
Questa regola tuttavia, come vedremo tra poco, non è sempre valida, le eccezioni non sono certo rare (uccelli, elefanti, tartarughe, talpe, cetacei…). Questo apparente scostamento dalle attese statistiche è noto come paradosso di Peto: nonostante l’enorme numero di cellule e la lunga durata della vita, questi animali non mostrano un’incidenza tumorale proporzionalmente più elevata rispetto a specie più piccole o a vita breve.
Infatti, uno studio condotto dai ricercatori dell’Arizona (Zachary, 2025) ha rilevato che, per ogni aumento di dieci volte della massa corporea, il rischio di cancro cresceva solo del 2,1%, contraddicendo il paradosso di Peto in senso stretto. I dati raccolti mostrano una grande variabilità tra le specie: delfini, focene comuni e pinguini dai piedi neri presentavano tassi di cancro inferiori al 2%, mentre i furetti raggiungevano il 63%. Lo studio europeo ha evidenziato tassi molto bassi in specie come il pecari collare, la capra domestica e il mara della Patagonia. In generale, uccelli e tartarughe risultavano i gruppi meno colpiti, con incidenza sotto l’1%, al contrario di alcune specie di serpenti, come il crotalo diamantino, che mostrava un tasso del 29%.
Una prima attenuazione al modello lineare iniziale consiste nel considerare che, negli organismi di grandi dimensioni, le cellule tendono a essere mediamente più voluminose (una sorta di ipertrofia fisiologica), il che riduce il numero totale di cellule a parità di massa corporea. Inoltre, questi organismi presentano frequentemente un metabolismo più lento, con un conseguente minor tasso di replicazione cellulare e un potenziale ridotto rischio mutazionale per unità di tempo. Seguono quindi gli straordinari adattamenti dei casi specifici costituenti queste eccezioni:
Per primi, negli uccelli l’incidenza tumorale è significativamente inferiore rispetto ai mammiferi e rettili. Si ipotizza che ciò sia dovuto a un sistema immunitario più efficiente (causa prossima) e a una selezione evolutiva legata alla miniaturizzazione (nanismo) dei loro antenati dinosauri, che ha favorito meccanismi di regolazione tumorale più stringenti (causa remota, evolutiva). Quindi è semplicemente un carattere neutro-vantaggioso che hanno conservato dai loro antenati che, invece, ne avevano più bisogno. Un residuo evolutivo non dannoso.
Nei pipistrelli, l’incidenza è anch’essa bassa. La causa prossima potrebbe essere l’efficiente attività delle pompe ABC, come la ABCB1, che espellono sostanze cancerogene dalle cellule, riducendo il danno al DNA. La causa remota rimane incerta, ma potrebbe essere legata alla miniaturizzazione, al volo o a un sistema immunitario potenziato.
Anche l’eterocefalo glabro presenta un’incidenza minima di tumori. La causa prossima sembra essere la presenza di acido ialuronico ad alto peso molecolare nella matrice extracellulare, che impedisce l’adesione delle cellule tumorali. La causa evolutiva potrebbe essere la selezione naturale che ha premiato lo sviluppo di una pelle resistente per scavare cunicoli, con un effetto secondario di riduzione del rischio tumorale.
Ancora una strategia adottata da grossi mammiferi, come l’elefante africano (Loxodonta africana), e quelli iraci e sirenidi, è la refrattarietà alla mutazione e la ridondanza genetica. Infatti essi possiedono più copie del gene TP53 (per l’oncosprressore p53), in modo che se dovesse malauguratamente mutare una copia, c’è ne sono altre pronte a compensare. Un’ultima ipotesi, che prende come esempio le balene, spiega la minore mortalità di tumore in grossi animali con il fatto che la crescita tumorale è più lenta e impiega più tempo per essere mortale delle altre cause di morte. In pratica un tumore in una balena prima di diventare abbastaza grosso da essere pericoloso impiega anni o decenni diminuendo così la probabilità che sia proprio quello la causa di morte.
Per farla breve, non esiste un meccanismo universale di difesa contro il cancro.
Hallmarks of cancer: i segni distintivi dei tumori
Riprendendo il discorso, le cellule neoplastiche acquisiscono una serie di capacità, definite come “Hallmarks of Cancer”. Questi “tratti caratteristici” non emergono necessariamente in un ordine prestabilito, né sono tutti simultanei: spesso si accumulano in modo indipendente l’uno dall’altro. Tuttavia, in molti casi, l’acquisizione di un hallmark può favorire l’insorgenza di altri -ad esempio, una ridotta efficienza nei meccanismi di riparo del DNA facilita l’accumulo di ulteriori mutazioni, tra cui quelle che permettono l’evasione della sorveglianza immunitaria.
Questa dinamica progressiva rende la trasformazione neoplastica un processo multifasico e multistep, dove ogni tappa contribuisce all’espansione clonale e alla complessità biologica del tumore. Si riporta quindi un elenco di alcuni dei principali e più interessanti tratti che caratterizzano le neoplasie:
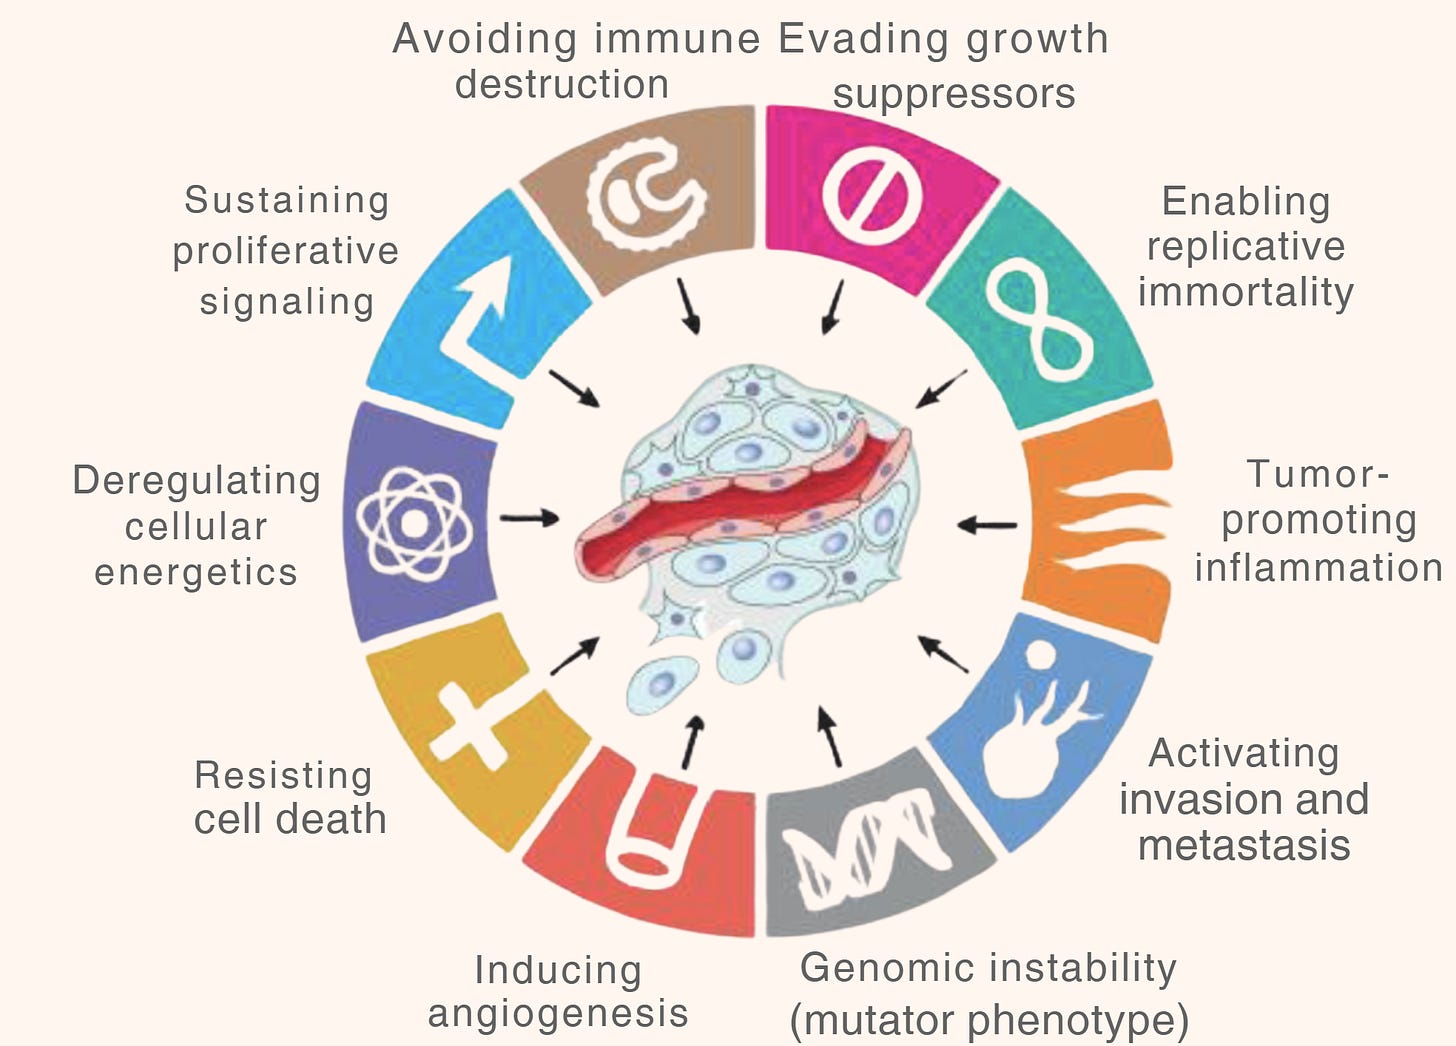
- Favorimento della proliferazione: Questa è l’unica condizione necessaria, ma non sufficiente, che accomuna tutte le neoplasie maligne, le cellule tumorali infatti proliferano in modo incontrollato. Relativo ai geni che permettono l’uscita dal ciclo cellulare, la de-diferenziazione a cellula staminale e la perdita di inibizione da contatto.
- Evasione dai soppressori della crescita: Ignorano i segnali che normalmente limiterebbero la loro crescita e divisione. Spesso non indipendenti da CDK, cicline e altri fattori di crescita o di controllo.
- Resistenza alla morte cellulare: Normalmente, le cellule danneggiate o mutate attivano meccanismi di morte programmata (apoptosi); le cellule cancerose acquisiscono resistenza a questa morte. Ad esempio, già citata è la proteina p53 definita come “il guardiano del genoma”.
- Garantire l’immortalità replicativa: Mentre le cellule normali hanno un numero limitato di divisioni (legate all’accorciamento dei telomeri), le cellule tumorali superano questa limitazione, spesso riattivando l’enzima telomerasi che allunga i telomeri, acquisendo così la capacità di replicarsi all’infinito.
- Induzione dell’angiogenesi: Un tumore solido, superata una certa piccola dimensione, ha bisogno di nuovi vasi sanguigni per ricevere ossigeno e nutrienti. Le cellule tumorali quindi possono trovare la pressione selettiva adatta alla selezione di cloni con proprietà pro-angiogenetiche (magari richiamando fattori di crescita, come VEGF), sfruttando quindi un meccanismo fisiologico (come quello che avviene nella riparazione delle ferite o nello sviluppo).
- Evasione immunologica: Il nostro sistema immunitario è normalmente in grado di riconoscere e distruggere le cellule “trasformate”. Le cellule tumorali sviluppano meccanismi per sfuggire a questa sorveglianza.
- Riprogrammare il metabolismo energetico: modificare i pathways del metabolismo per supportare la rapida proliferazione è un’altra strategia evolutiva tipica, ad esempio favorendo la glicolisi (effetto Warburg) o riuscendo a sopravvivere in condizioni anaerobiche (HIF) di ipossia -carenza di ossigeno- dovute alla crescita neoplastica non accompagnata da vascolarizzazione omogenea.
- Scarsa efficienza nel riparo dei danni al genoma: come già esposto aumentare il possibile numero di mutazioni per una scarsa riparazione del genoma aumenta, probabilisticamente, anche l’insorgenza degli altri hallmarks sopra citati.
- Attivare l’invasione e la metastasi: può essere selezionata la capacità di invadere i tessuti circostanti e migrare verso siti distanti nel corpo per formare tumori secondari -metastasi-. La metastasi è la causa della quasi totalità dei decessi per cancro.Questo processo è complesso e richiede alle cellule di staccarsi (perdendo le giunzioni cellula-cellula), migrare, entrare nei vasi sanguigni, linfatici o tramite altre cavità, circolare, uscire dai vasi nel sito secondario e colonizzare. O tramite altri meccanismi che ne permettono la mobilità; caratteristica che sarà molto importante successivamente quando verranno trattati i tumori trasmissibili.
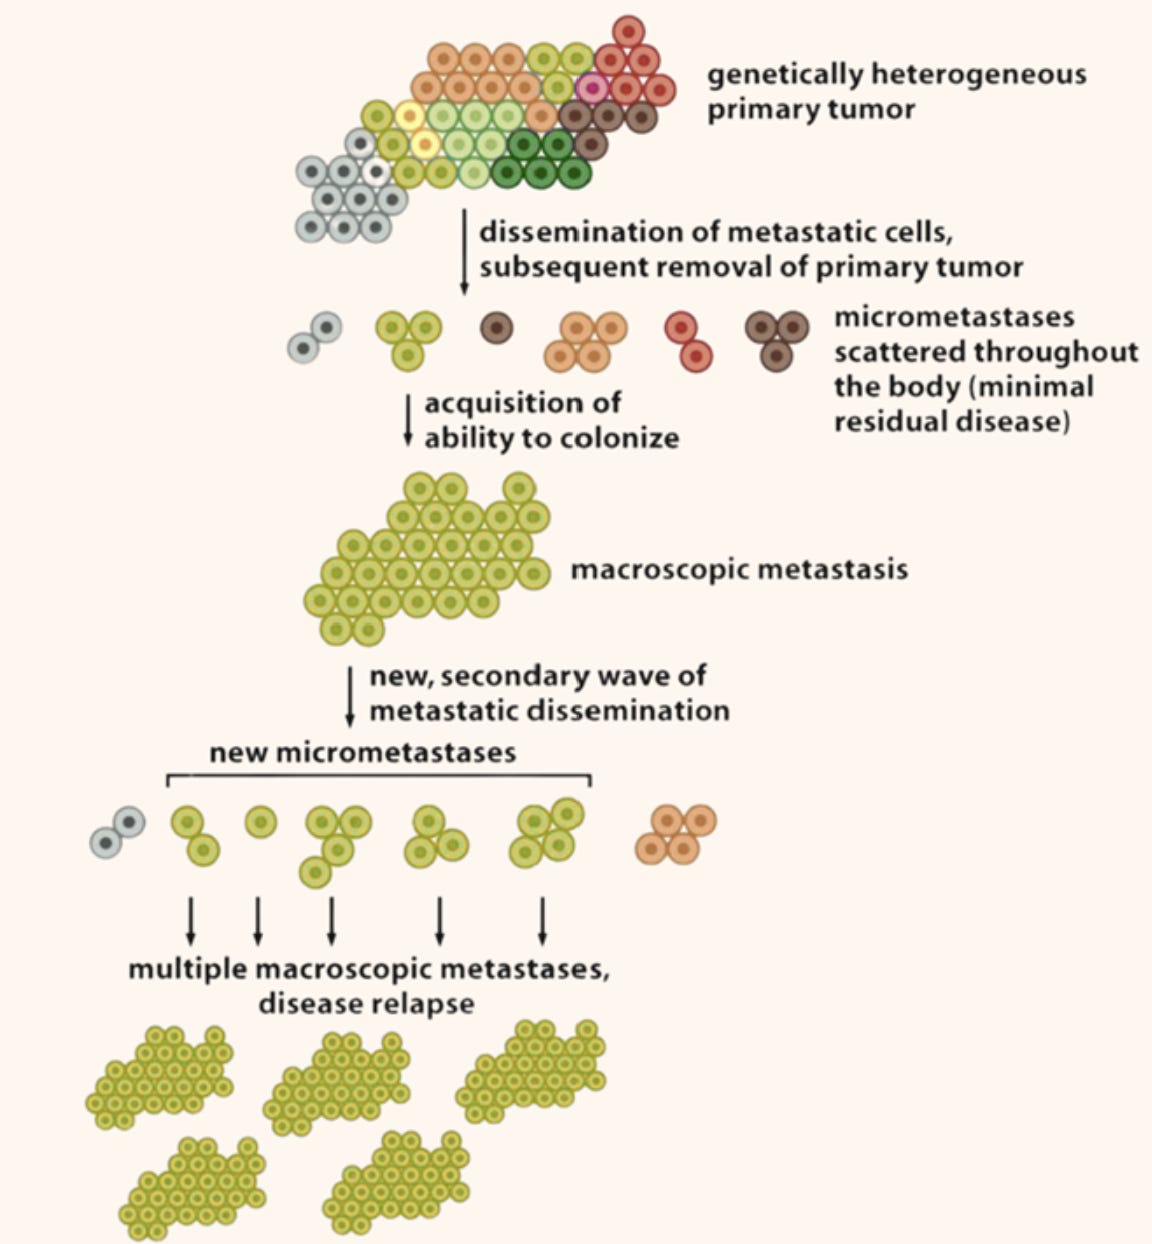
Nel complesso, il panorama oncologico si configura come un sistema intrinsecamente complesso e altamente variabile, in cui ciascun “hallmark” può essere raggiunto attraverso una molteplicità di percorsi molecolari -pathways- alternativi, sostenuti da circuiti biochimici differenti e coinvolgenti centinaia di geni potenzialmente rilevanti. L’assetto dei geni coinvolti, bersagli di eventuale intervento terapeutico, differisce in maniera significativa non solo tra individui diversi, ma anche tra neoplasie insorte in sedi corporee differenti nello stesso paziente.
Nonostante tale eterogeneità, su base statistica si osservano ricorrenze: alcuni tessuti, così come certi gruppi etnici, mostrano una maggiore predisposizione a specifici profili mutazionali o all’acquisizione convergente di determinati “hallmarks”.
Approfondendo, come già accennato gli “hallmarks” -gli effetti- derivano da modificazioni genetiche ed epigenetiche. Quindi in riferimento ai geni che causano come effetti i tratti tipici dei tumori, si parla di oncogeni e oncosoppressori. I proto-oncogeni sono geni che fisiologicamente promuovono la proliferazione cellulare, ma in momenti o in popolazioni cellulari specifiche (come durante lo sviluppo o la riparazione dei tessuti). Quando mutano o vengono deregolati (ad esempio, finendo sotto il controllo di un promotore sempre attivo), diventano oncogeni, promuovendo la crescita incontrollata. Un esempio classico è il gene MYC, che regola l’ingresso nel ciclo cellulare; se MYC, come nel linfoma di Burkitt, finisce sotto il controllo di un promotore costantemente attivo (quello delle immunoglobuline nei linfociti B), la cellula prolifera senza freno. Gli oncosoppressori, invece, sono geni “guardiani” che bloccano la proliferazione o inducono la morte cellulare in risposta a danni o segnali anomali. Quindi, se un oncosoppressore (come il già citato p53) muta e perde la sua funzione, viene a mancare un freno critico. L’attivazione di un oncogene da sola di solito non basta a formare un tumore, proprio perché esistono i sistemi di controllo mediati dagli oncosoppressori.
I tumori possono originare da quasi tutti i tipi cellulari. La maggior parte deriva dagli epiteli (carcinomi), ma ci sono anche tumori che originano dai tessuti connettivi (sarcomi) o dal sistema nervoso (tumori neuroectodermici). La probabilità di sviluppare tumori nelle diverse sedi corporee varia enormemente, ed è influenzata da fattori ambientali e legati allo stile di vita, oltre che dalla suscettibilità genetica -ad esempio i carcinomi sono i più rappresentati poiché è la pella il tessuto maggiormente esposto alle radiazioni solari, note mutagene. Ovviamente la probabilità di passaggio a neoplasia cambia a seconda dell’attività metabolica o al continuo ricambio cellulare che avviene in molti tessuti.
Anche la metastatizzazione segue vie diverse (linfatica, ematica, transcelomatica nelle cavità corporee). La probabilità e le sedi preferenziali delle metastasi possono dipendere dal tipo di tumore primario. È affascinante notare come le cellule neoplastiche spesso conservino alcune caratteristiche istologiche e funzionali del tessuto da cui provengono.
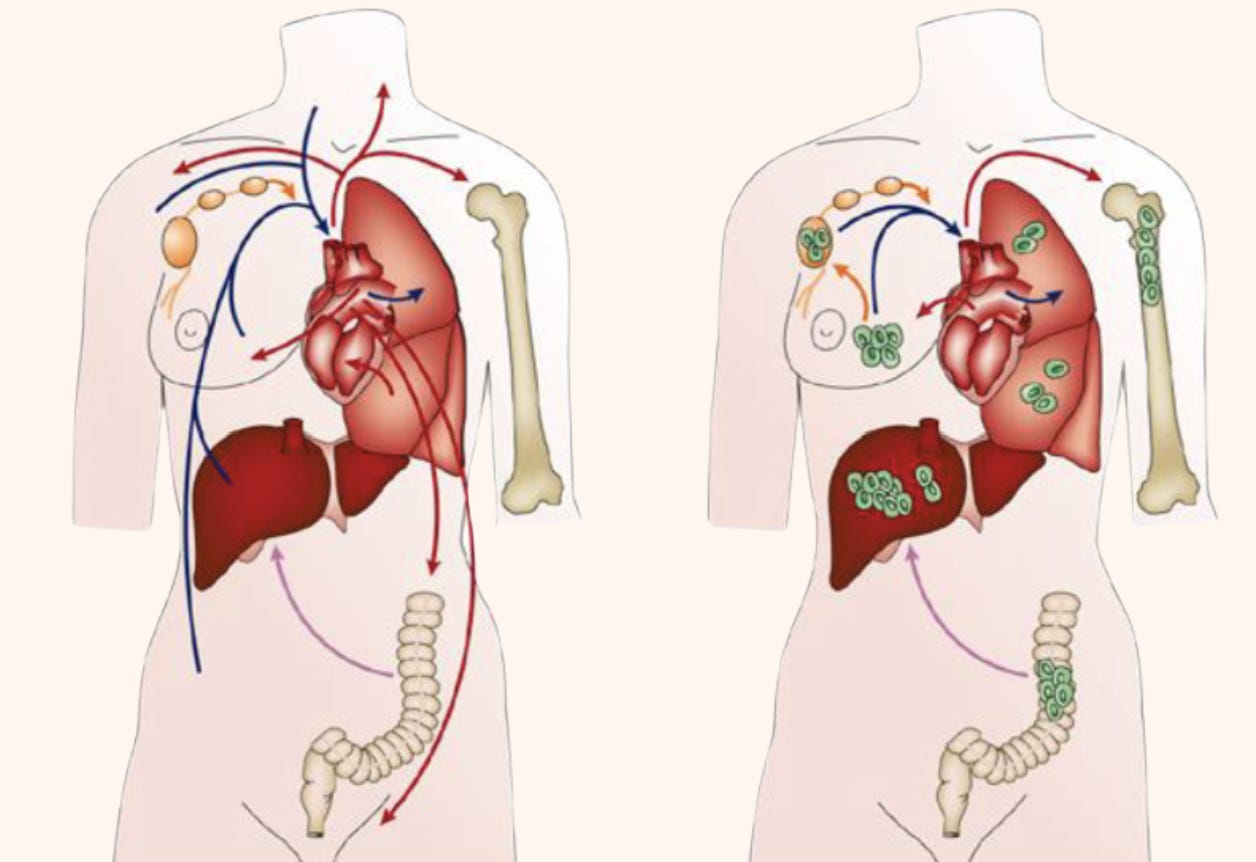
Un’altra specificazione fondamentale da far presente è che le cellule tumorali non sono quasi mai isolate. Accanto alle cellule neoplastiche (il parenchima tumorale), c’è un complesso insieme di cellule “normali” reclutate “come schiave” (fibroblasti, cellule immunitarie, endoteliali, ecc.) e matrice extracellulare, che costituiscono lo stroma o microambiente tumorale. Questo microambiente non è un semplice supporto passivo; interagisce attivamente con le cellule tumorali e contribuisce all’acquisizione delle hallmarks, influenzando la crescita, l’invasione e la risposta alle terapie. Ad esempio, le cellule neoplastiche possono indurre lo stroma circostante (creano un finto segnale) a produrre fattori di crescita e altre molecole che ne favoriscono la sopravvivenza, la proliferazione o l’invasività.
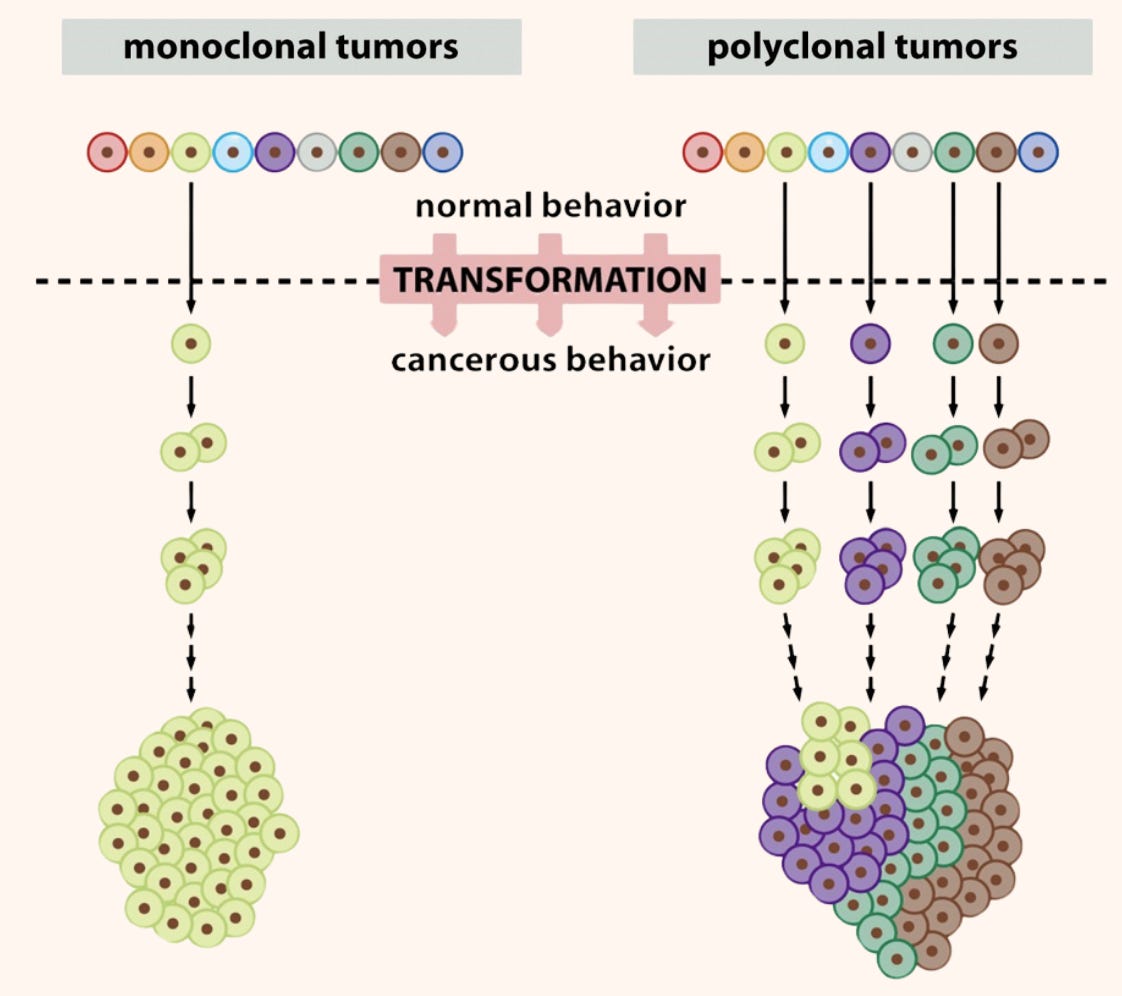
L’ultima specifica, necessaria per capire anche quando i tumori possono essere trasmissibili, è l’origine della neoplasia. I tumori possono essere infatti monoclonali, ovvero se derivano da un’unica cellula ancestrale; oppure policlonale, quando inizia da più cellule (più raro), in cui solo successivamente la selezione di una singola sottopopolazione più aggressiva porta alla dominanza monoclonale nel tumore osservato clinicamente.
In conclusione le neoplasie sono una patologia complessa, un capolavoro di evoluzione cellulare. Non è un singolo difetto, ma una combinazione di meccanismi che si “rompono”, che la cellula sfrutta per acquisire nuove capacità, spesso “riattivando” programmi biologici che esistono già ma in maniera deregolata e dannosa per l’organismo. Comprendere il cancro significa comprendere la rottura di equilibri finemente regolati, la lotta tra i sistemi di controllo dell’organismo e l’adattamento evolutivo delle cellule neoplastiche. Ogni tumore, con la sua unica combinazione di mutazioni, il suo specifico microambiente e storia evolutiva rende la ricerca e la terapia del cancro una sfida così grande e affascinante. Su questa luce è quindi facile capire anche la logica dietro i vaccini antitumorali, di cui si sta parlando molto in questo periodo, sia quelli preventivi (come quello contro HPV, mirato a ridurre il rischio di tumori alla cervice uterina e orofaringei), sia quelli terapeutici, pensati per attivare il sistema immunitario contro antigeni specifici espressi da alcuni tumori. Si tratta di un ambito vasto e in rapido sviluppo, che potrà essere approfondito in un futuro articolo se richiesto.
Alla luce di quanto detto, risulta evidente che, quando si parla di tumore, non ci si riferisce solamente ad una massa di cellule, ma un vero e proprio ecosistema in continuo cambiamento, plasmato da processi genetici, cellulari e tissutali; un riflesso dei principi fondamentali della biologia evoluzionistica e molecolare.
Reduci da questa ampia introduzione -che mi auguro non vi abbia troppo provati – è ora il momento di andare finalmente al vero fulcro di questo articolo: un raro ma affascinante fenomeno, ossia l’esistenza di neoplasie trasmissibili, iniziando dal tumore venereo nei canidi, tratteremo anche i casi dei diavoli della Tasmania, dei bivalvi e dei criceti siriani; passeremo successivamente dagli xenotrapianti in laboratorio fino ad arrivare all’uomo e ad altre affascinanti curiosità.
Quando il cancro è una malattia Infettiva
Come ormai immaginerete, i tumori generalmente non sono contagiosi o capaci di creare metastasi in altri individui. Infatti se le cellule tumorali viaggiassero da un organismo all’altro, un normale sistema immunitario sarebbe in grado di riconoscerle come estranee e rigettarle. Per questo, Il cancro è solitamente considerato una malattia autolimitante: o regredisce o uccide il suo ospite, e la morte dell’ospite segna la fine del lignaggio tumorale stesso.
Tuttavia la meraviglia della biologia è che esistono sempre delle eccezioni alle regole che cerchiamo di definire, l’unicità della vita è trovare sempre nuovi modi e forme di manifestarsi: nonostante la rarità del fenomeno, è successo molte volte che cellule tumorali sono diventate dei veri e propri “parassiti trasmissibili”, trascendendo i confini dei loro ospiti d’origine selezionando -evolvendo- la capacità di infettare, come metastasi secondarie, un altro individuo (solitamente della stessa specie per ragioni filogenetiche) tramite trasferimento diretto. I tumori trasmissibili, vanno infatti oltre al rigore e ai modelli con cui si cerca di catalogare le specie pur soddisfacente tutti i requisiti per essere considerati “vita autonoma”.
Non si parla di virus…
In un recente studio (Metzger MJ, Goff SP 2016), è stato proposto di classificare questo nuovo metodo di parassitismo come una sesta categoria di agenti infettivi, distinta dalle cinque tradizionali: virus, batteri, funghi, parassiti multicellulari e prioni. Tuttavia, è importante sottolineare che questa nuova categoria non coincide con i classici agenti oncogeni virali. In altre parole, quando si parla di tumori trasmissibili, non ci si riferisce a quelli che si formano ex-novo nell’organismo a causa di alcuni virus come il papillomavirus umano (HPV), i virus dell’epatite B e C (HBV, HCV), l’herpes (HHV-8), il virus T-linfotropico (HTLV-1), o il ben noto virus di Epstein-Barr (EBV).
Questi ultimi, infatti, agiscono attraverso meccanismi molecolari ben noti: in genere possiedono un genoma a doppio filamento di dsDNA (o vi convertono il proprio genoma da ssRNA a dsDNA), che è in grado di integrarsi nel DNA dell’ospite. Tale integrazione può alterare l’espressione genica, attivando oncogeni o silenziando geni oncosoppressori, con il risultato di promuovere e facilitare lo sviluppo di neoplasie, spesso di tipo policlonale.
… e nemmeno di regno vegetale
Nel regno vegetale, non esistono tumori trasmissibili nel senso stretto in cui li intendiamo per gli animali o per l’uomo. Tuttavia, ci sono forme di crescita anomala e patologie simili ai tumori che possono diffondersi tra le piante, ma la trasmissibilità non è dovuta a cellule vegetali tumorali bensì a agenti patogeni (come batteri, virus o insetti) che inducono queste anomalie (le Galle causate da Cinipidi delle querce; grobacterium tumefaciens, la Cuscuta o da altri funghi, nematodi, virus e fitoplasmi). Oltre a questo, la gemmazioni o le varie forme di innesti, talee, fusioni, clonazioni vegetali, propaggini e polloni non si possono considerare come tumori in quanto parte dei metodi “fisiologici” di riproduzione asessuata trovati dal regno vegetale, o mediati dall’uomo, e non delle vere e proprie eccezioni al margine della vita stessa.
Al contrario, nei rari casi avvenuti nei vertebrati questi meccanismi si possono definire come patologici. Le modalità di trasmissione variano e includono i contatti sessuali, i morsi -o altre ferite aperte-, lo scambio di sangue mediato da insetti, la filtrazione dell’acqua e, grazie alla tecnica umana, anche l’inoculazione sperimentale.
Infine, in homo sapiens, sebbene la trasmissione su larga scala del cancro non sia ancora mai stata osservata, sono esistiti diversi casi; spesso nel contesto di individui immunocompromessi. Nei prossimi paragrafi presenteremo infatti alcuni di questi affascinanti fenomeni.
Dog Condom: Il Tumore Venereo Trasmissibile Canino (CTVT)
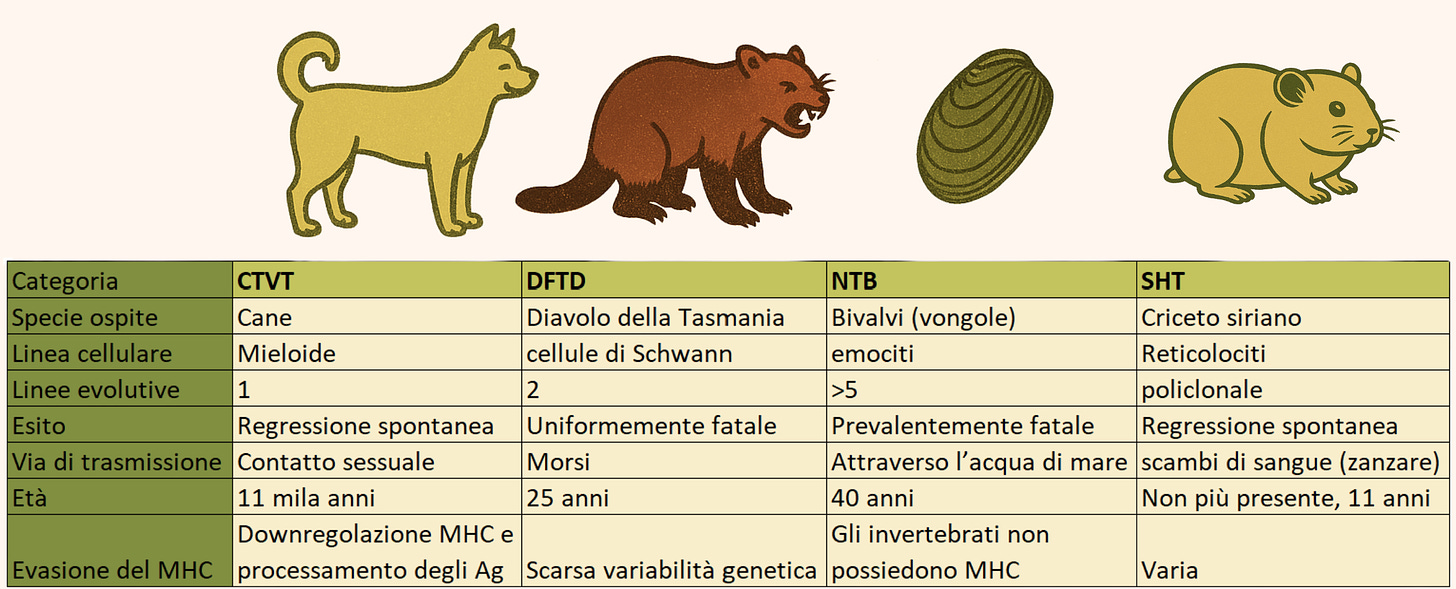
Il più antico, e famoso, esempio di tumore trasmissibile non causato dall’uomo è Il “Canine Transmissible Venereal Tumor” (CTVT). Si tratta di un tumore solido che colpisce i cani e si trasmette principalmente attraverso l’accoppiamento, ma anche tramite comportamenti sociali come il “leccamento”, i morsi o contatto con mucose infette. Le cellule tumorali vengono trasferite da un cane all’altro, impiantandosi nei tessuti del nuovo ospite e dando origine a una nuova massa tumorale.
Eziologicamente, si tratta di una linea cellulare monoclonale originatasi da un unico cane vissuto circa 11.000 anni fa, probabilmente riconducibile a una razza arcaica affine all’Alaskan Malamute o allo Spitz. Questo singolare lignaggio ha attraversato millenni evolutivi, trasmettendosi di cane in cane come un vero e proprio parassita unicellulare -ma pluricellulare- asessuato, mantenendo nel contempo una sorprendente stabilità genomica nonostante l’accumulo massivo di mutazioni.
Facendo cadere l’erronea ipotesi iniziale secondo cui si trattasse di un cancro causato da un virus oncogeno (policlonale) anche l’analisi filogenetica ha dimostrato che tutte le cellule CTVT viventi oggi sono discendenti dirette di quella singola neoplasia ancestrale, rendendolo, di fatto, un organismo autonomo moltiplicatosi e sopravvissuto più di 500 generazioni di ospiti. In realtà, ogni CTVT è una metastasi vivente, clonata e diversa dall’originale. Una delle caratteristiche più singolari è la capacità del CTVT di acquisire genomi mitocondriali dai suoi ospiti nel corso del tempo, un processo ripetuto che ha probabilmente contribuito a mitigarne la degenerazione genetica prevista dal meccanismo noto come “Muller’s ratchet”, una trappola evolutiva che colpisce tipicamente i lignaggi asessuati.
Clinicamente, il CTVT è endemico nelle popolazioni di cani randagi su scala globale e, benché generalmente non letale, può persistere per diversi anni. Nelle infezioni naturali, la regressione del tumore non è garantita, a differenza dei casi sperimentali dove il trapianto tumorale tende a regredire in pochi mesi. Fortunatamente, una nuova terapia con vincristina (Frampton, 2018) è altamente efficace e induce regressione.
In sintesi, già con il CTVT possiamo vedere come i tumori trasmissibili, non siano semplicemente delle neoplasie, ma entità biologiche singolari che sfidano le classificazioni oncologiche convenzionali: organismi parassiti, stabili ma in continua coevoluzione con i loro ospiti, che hanno saputo sfruttare le regole dell’evoluzione clonale e parassitaria per perpetuarsi nei secoli. La loro esistenza dimostra che i confini tra tumore, infezione e organismo autonomo possono essere ben più sfumati di quanto la classificazione biologica classica abbia mai osato ipotizzare.
Vicino all’estinzione: Il tumore Facciale del Diavolo della Tasmania (DFTD)
Un secondo e completamente differente esempio di tumori trasmissibili lo ritroviamo nei diavoli della Tasmania: Infatti il Devil Facial Tumour Disease (DFTD) rappresenta uno dei casi più emblematici e drammatici, responsabile di una crisi conservazionistica senza precedenti nei diavoli della Tasmania (Sarcophilus harrisii), marsupiali carnivori un tempo diffusi anche nel continente australiano ma oggi confinati esclusivamente all’isola di Tasmania. Dopo una storica decimazione dovuta alla persecuzione umana e alla frammentazione dell’habitat, la loro popolazione aveva cominciato a riprendersi nella seconda metà del XX secolo, raggiungendo nuovamente alcune migliaia di individui. Tuttavia, nel 1996 è stato osservato il primo caso di un tumore facciale solido altamente aggressivo, che si è rivelato essere trasmissibili. La “malattia” si propaga da un individuo all’altro principalmente attraverso i morsi, un comportamento comune nei diavoli della Tasmania durante le interazioni sociali legate all’accoppiamento. Questo tumore ha rapidamente devastato la popolazione, diffondendosi con una velocità epidemica e causando tassi di mortalità prossimi al 100%, facendo tornare così la specie sull’orlo dell’estinzione.
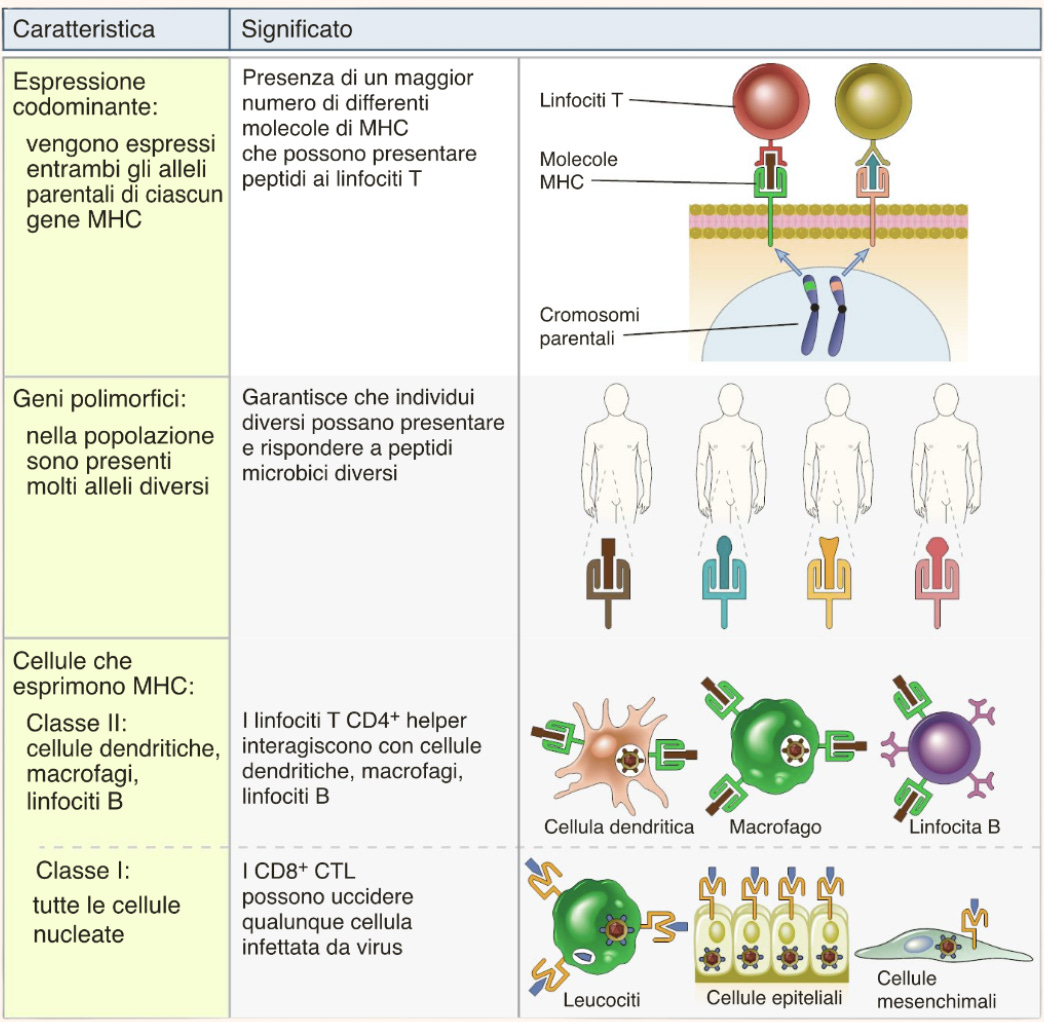
L’elemento critico che ha consentito questa trasmissione è stata l’estrema omogeneità genetica della popolazione, dovuta a un collo di bottiglia genetico verificatosi nel recente passato evolutivo. In sostanza, l’espansione demografica del XX secolo è derivata da un bassissimo numero di fondatori, e, di conseguenza, hanno bassissima variabilità genetica tra di loro: la loro discendenza risulta oggi geneticamente quasi omozigote. Questo significa che il sistema immunitario dei diavoli è incapace di riconoscere le cellule del DFTD come estranee (non self), proprio come accadrebbe tra gemelli monozigoti che tratteremo tra poco: in altre parole il locus genico per gli MHC non è polimorfico all’interno della popolazione. Qua sta quindi il più grande punto di differenza con i cani che, dotati di una maggiore eterogeneità immunogenetica, riconoscono e rigettano il CTVT.
Come se non bastasse, un secondo lignaggio completamente indipendente, denominato DFT2, è stato scoperto in tempi più recenti in un numero limitato di esemplari maschi. A differenza del DFT1 (DFTD primario), che ha avuto origine da una femmina, il DFT2 è sorto da un maschio e sembra al momento meno diffuso, ma la sua stessa esistenza suggerisce che l’emergenza di tumori trasmissibili potrebbe non essere un evento così raro in contesti di bassa diversità genetica, e che l’evoluzione convergente può dar luogo a fenomeni di neoplasia clonale indipendente, se le condizioni biologiche lo consentono.
L’epidemia di DFTD nei diavoli della Tasmania sta dimostrando tragicamente quanto possa essere fragile una popolazione anche numericamente robusta, ma con poca variabilità, a rispondere alle minacce biologiche.
Le predisposizioni geniche dei criceti siriani
Nel caso dei criceti siriani (Mesocricetus auratus), sebbene siano molto meno documentate in letteratura rispetto ai cani e ai diavoli della tasmania, è stata riscontrata la presenza di tumori trasmissibili di origine clonale, emersi indipendentemente più volte (solitamente in linee laboratoriali, animali modello), ma accomunati da un pattern evolutivo e genetico ricorrente. A differenza del CTVT del cane, che ha un’origine chiaramente monofiletica -da un unico antenato- e una persistenza millenaria, nei criceti siriani i tumori trasmissibili tendono a manifestarsi, diffondersi per un periodo limitato; il più lungo è durato undici anni.
L’evidenza di diverse insorgenze -comparse episodiche- policlonali deriva dalla documentazione di casi sporadici di sarcoma a cellule reticolari, con probabile origine indipendente. Quindi, il criceto siriano, per ragioni genetiche ancora poco chiare, è particolarmente predisposto all’evoluzione convergente di tumori trasmissibili.
Questa tendenza potrebbe essere ulteriormente accentuata dal fatto che i criceti siriani utilizzati in laboratorio derivano da un numero estremamente ridotto di fondatori (collo di bottiglia). Per esempio la maggior parte delle linee usate come animale modello in laboratorio derivano da una singola cucciolata raccolta negli anni ’30 del Novecento e preservata identica ancora oggi.
la ripetuta e transitoria comparsa di questi tumori è oggi utilizzata come modello di studio sperimentale delle condizioni minime necessarie affinché un tumore acquisisca capacità trasmissibile e per comprendere i limiti evolutivi di tale strategia oncogenica.
Tanti bivalvi, tanti tumori
L’ultimo esempio documentato che abbiamo deciso di riportare è quello relativo alle neoplasie trasmissibili nei bivalvi (NBT). La loro caratteristica unica è la portata, enorme se paragonata ai casi visti precedentemente. Si tratta di neoplasie letali, simili a leucemie, segnalate in almeno 15 specie diverse di bivalvi, caratterizzate da un comportamento epizootico -a picchi di incidenza- e da una morfologia disseminata delle cellule neoplastiche nel sistema emolinfatico. Queste patologie possono persistere in popolazioni a livello enzootico -stabile-, ma, come già detto, sono stati documentati gravi focolai epizootici, come quello verificatosi nelle vongole dal guscio molle (Mya arenaria) sull’Isola del Principe Edoardo, in Canada, dove si sono raggiunti tassi di prevalenza superiori al 90%, con conseguenti collassi demografici massicci.
Le cellule tumorali stesse si trasmettono da un individuo all’altro in maniera clonale (si ricorda che gli invertebrati, tra cui i bivalvi, non hanno MHC per riconoscere il non self). Come per il CTVT e il DFTD, l’evidenza della trasmissibilità tumorale diretta senza vettori virale è stata permessa dallo studio dell’identità dei siti di integrazione di retrotrasposoni, dall’amplificazione genica aberrante e dalla condivisione di profili microsatellitari e SNP mitocondriali tra cellule tumorali; in altre parole, i tumori presentavano genomi differenti da quelli dell’ospite infettato ed avevano grande identità tra di loro.La trasmissione avviene quindi tramite infiltrazioni di acqua che trasportano “metastasi” del tumore primario.
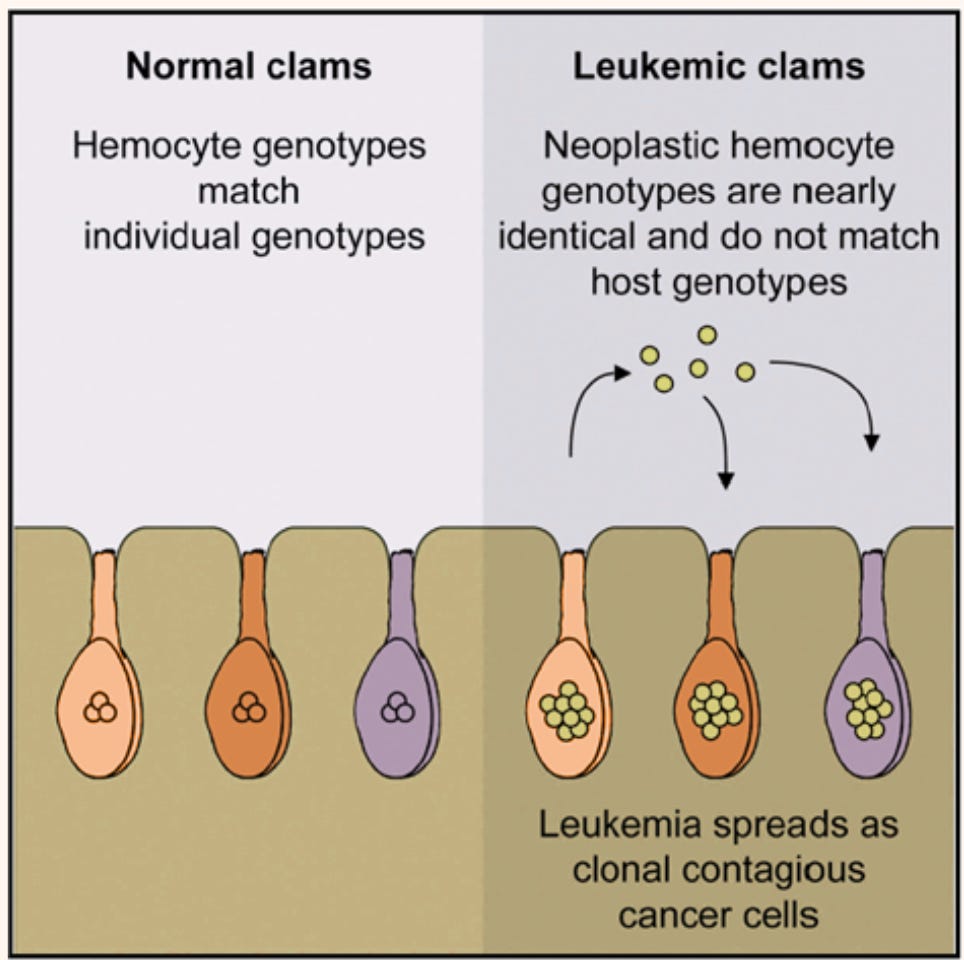
Ed è ancora più straordinario il fatto che in recenti studi molecolari condotti su tre ulteriori specie di bivalvi -il mitilo (Mytilus trossulus), il cardo (Cerastoderma edule) e la vongola tappeto dorata (Polititapes aureus)- siano stati identificati lignaggi NBT indipendenti. Questo dato suggerisce una convergenza evolutiva, e quindi una certa funzionalità di questo meccanismo di proliferazione. Se un adattamento si è manifestato in modo analogo e indipendente in più contesti distinti, ciò costituisce una forte indicazione della sua efficacia funzionale e della sua stabilità evolutiva, escludendo con ragionevole certezza l’ipotesi che l’osservazione dei ricercatori sia attribuibile al caso fortuito.
Nei casi del mitilo e del cardo, i tumori derivano direttamente dalle stesse specie ospiti, mentre nel cardo sono stati identificati due lignaggi NBT distinti, entrambi capaci di diffondersi all’interno della stessa popolazione. Tuttavia, il caso più destabilizzante ed interessante è quello di P. aureus, in cui l’agente neoplastico deriva addirittura da un’altra specie, la Venerupis corrugata, marcando un raro esempio di trasmissione interspecifica di un tumore (su cui torneremo tra poco), con la paradossale osservazione che V. corrugata, pur essendo la fonte cellulare del tumore, non manifesta la malattia in modo endemico.
Riassumendo, la presenza ricorrente di BTN in tutte e quattro le specie finora analizzate suggerisce che questi tumori non sono un’eccezione, ma una regola nel mondo dei bivalvi: probabilmente, la gran parte dei casi di neoplasia disseminata in questi animali è da attribuire a forme di NBT ancora non caratterizzate. Anche in questo caso, le implicazioni evolutive e ambientali sono enormi: queste forme di tumore si comportano come organismi unicellulari parassiti che hanno acquisito piena autonomia biologica, sfidando le nostre definizioni canoniche di cancro.
E nell’uomo?
La trasmissione interumana del cancro rappresenta un fenomeno eccezionalmente raro, reso possibile solo in circostanze altamente peculiari, poiché in individui “sani” qualsiasi cellula tumorale estranea è prontamente riconosciuta e distrutta dal sistema immunitario. Tuttavia, come sempre, non mancano le eccezioni: Sono stati infatti documentati alcuni casi di passaggio effettivo di cellule tumorali tra individui umani, sia in contesti clinici che fisiologici.
Tra le situazioni meglio caratterizzate rientrano quelle legate alla gravidanza, dove può verificarsi il trasferimento di cellule tumorali dalla madre al feto attraverso la barriera placentare, o, più raramente, in senso inverso (ad esempio nel contesto di gravi malformazioni come la spina bifida) e persino tra gemelli fetali (omozigoti e non), fenomeno reso possibile dalla condivisione della circolazione sanguigna in utero.
Fortunatamente, nei gemelli omozigoti postnatali, nonostante l’identità genetica, non sono mai stati documentati casi di trasmissione tumorale, a sottolineare il ruolo cruciale dell’ambiente immunologico e delle barriere fisiologiche nella prevenzione di tale evenienza.
Nell’uomo, il fattore chiave in questo contesto è rappresentato dalle molecole del complesso maggiore di istocompatibilità (MHC), la cui estrema variabilità genetica -ovvero il loro elevato polimorfismo- fa sì che in una popolazione esistano migliaia di combinazioni diverse. Anche tra gemelli omozigoti, che condividono lo stesso patrimonio genetico, la compatibilità immunologica non è garantita in modo assoluto, poiché l’espressione degli alleli MHC può essere influenzata da fattori epigenetici e ambientali. La presenza di molti alleli differenti nella popolazione si è verosimilmente evoluta per assicurare che almeno alcuni individui siano in grado di presentare peptidi derivati da qualsiasi patogeno emergente (il motivo è dovuto proprio a dei limiti fisici per cui gli MHC hanno un “range” limitato di possibili antigeni riconoscibili), aumentando così le probabilità di sopravvivenza collettiva. In questo senso, l’ampia diversità degli MHC rappresenta una strategia evolutiva di protezione immunitaria a livello di specie, anche se può ostacolare la tolleranza immunologica tra individui singoli, come accade nel caso del rigetto dei trapianti o nella mancata trasmissione stabile di cellule tumorali tra soggetti geneticamente distinti.
L’altro importante ambito in cui la trasmissione tumorale è stata riportata è quello dei trapianti d’organo, dove cellule tumorali preesistenti nel donatore possono attecchire nel ricevente immunodeficente: si stima che questo accada in circa 0,04% dei trapianti, una percentuale modesta ma non trascurabile data la gravità dell’esito (è necessario fare un nuovo trapianto).
Tuttavia, sono stati riportati degli eventi che eludono addirittura queste due casistiche, riportati più come eventi unici che rari: è successo che un chirurgo (Gärtner HV, 1996), durante un intervento, si inoculò accidentalmente cellule tumorali attraverso una ferita alla mano; il tumore localizzato che ne seguì fu asportato e non recidivò. Questo evento emblematico ha però dimostrato come, in condizioni favorevoli, le cellule neoplastiche possono effettivamente attecchire anche in individui immunocompetenti. Praticamente identica fu l’esperienza di un ricercatore (NEJM, 1986) che sviluppò un piccolo nodulo in seguito a una puntura accidentale da ago contenente una linea cellulare tumorale umana; anche in questo caso, l’escissione chirurgica fu risolutiva.
Oltre i confini della specie: come la ricerca ne forza il salto
Un caso clinico, documentato per la prima volta nel 2013 in Colombia, ha rivelato un evento che, per quanto straordinariamente raro, rappresenta un affascinante ulteriore modalità di trasmissione tumorale. Protagonista è stato un paziente immunocompromesso a causa dell’infezione da HIV (AIDS), nel quale sono state riscontrate masse tumorali con cellule di dimensioni inusualmente piccole per essere di origine umana. Le successive analisi molecolari hanno permesso poi di identificare in modo inequivocabile il DNA di un verme solitario (tenia), specificamente la tenia Hymenolepis nana. Ormai, visto il tema dell’articolo, vi sarà facile prevedere che le cellule maligne provenissero dal parassita stesso. L’ipotesi quindi più accreditata è che la tenia abbia sviluppato una forma di cancro, presumibilmente dalle sue cellule staminali (neoblasti, le uniche cellule proliferative in questi organismi), e che tali cellule tumorali abbiano metastatizzato e proliferato attivamente all’interno del tessuto umano incapace di eliminarle a causa della malattia. Infatti, la grave immunosoppressione del paziente ha verosimilmente creato un ambiente permissivo che ha consentito alle cellule parassitarie di sfuggire al controllo immunitario dell’ospite e di accumulare mutazioni somatiche, portando alla proliferazione invasiva e alla trasformazione maligna osservata.
Anche se in ambienti ecologici non sottoposti a manipolazione sperimentale umana (“in natura”) i salti di specie sono eventi di estrema rarità, nei laboratori di ricerca biomedica questo stesso principio viene invece sfruttato sistematicamente. Infatti la pratica degli xenotrapianti (allotrapianti o trapianti eterologhi) consiste proprio nell’impianto di cellule tumorali umane in organismi di specie diverse.
Si utilizzano quindi animali modello come il topo (Mus musculus), le uova di pollo, il ratto norvegese (Rattus norvegicus) o lo zebrafish (Danio rerio) appartenenti a ceppi geneticamente modificati per essere immunodeficienti per impedire appunto al sistema immunitario dell’animale di rigettare le cellule umane impiantate. Questa tecnica, che è ormai da decenni un pilastro nella sperimentazione oncologica, ha consentito, e consente ancora ai ricercatori di osservare in vivo la crescita tumorale, testare farmaci e analizzare i meccanismi molecolari della progressione cancerosa (Presta M, 1999). Paradossalmente, quindi, ciò che “in natura” è un’anomalia al limite del biologicamente possibile diventa in laboratorio una strategia sofisticata e controllata per indagare proprio quei confini dell’oncologia sperimentale che l’evoluzione, da sé, ha portato a proteggere con barriere molto robuste.
Nuove forme per la vita
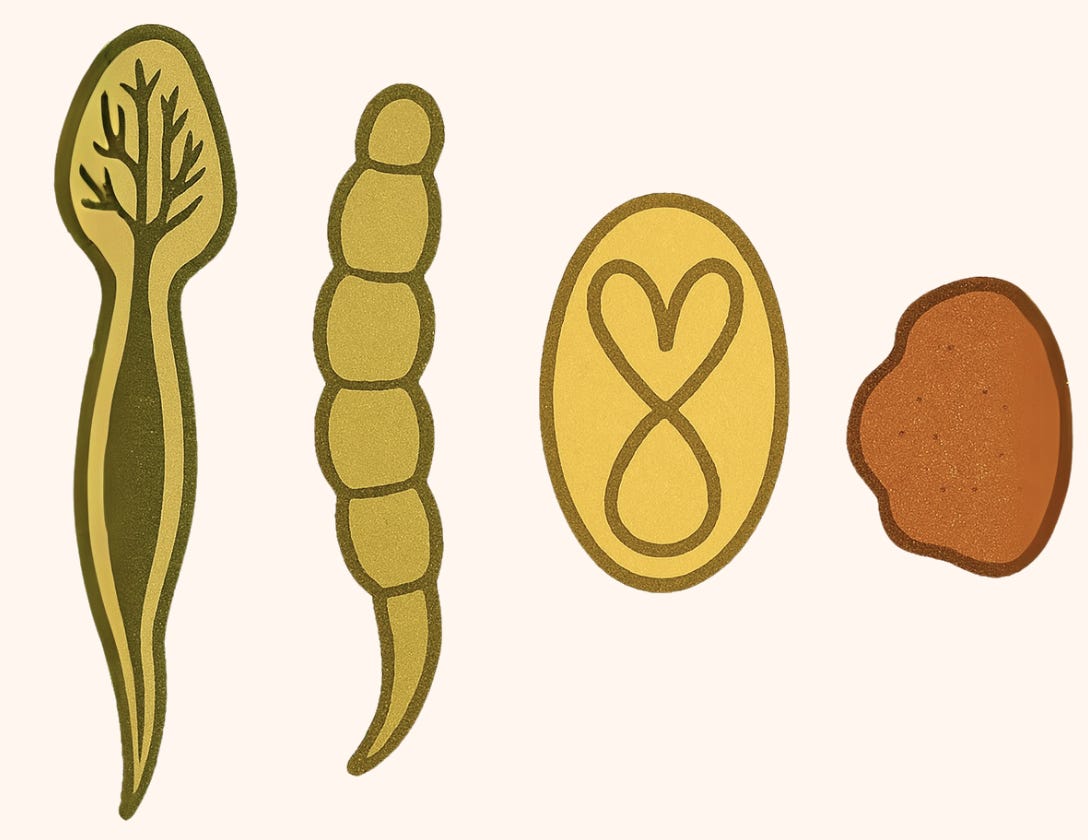
Esiste un ipotesi in letteratura scientifica (Panchin 2019), non ancora falsificata tramite orologi molecolari, che prova a spiegare alcuni taxa animali come discendenti di tumori trasmissibili. L’ipotesi parte dalla costatazione dell’esistenza di alcuni casi, come il CTVT, in cui una linea tumorale è sopravvissuta ai suoi ospiti originari per suggerire la possibilità teorica che alcune neoplasie, attraverso processi selettivi, possano evolvere in entità biologiche autonome, che possano presentarsi come nuove forme di vita con caratteristiche tali da configurarle come delle vere e proprie nuove specie.
Si sono trovati quattro potenziali candidati: Dicyemida, Orthonectida, Myxosporea e Trichoplax. Si tratta di organismi imparentati con i metazoi più complessi, presentanti alterazioni genomiche tipiche della progressione del cancro (come delezioni di geni universali per l’apoptosi e mancanza di soppressori tumorali cruciali), che potrebbero aver acquisito pluricellularità de novo. Tra i quattro gruppi di animali considerati l’analisi genomica suggerisce che i Myxosporea sono i candidati più adatti per un’origine tumorale. Questi cnidari parassiti (definiti nell’articolo come “semplificati”) mostrano, nella loro stoia evolutiva, la perdita del maggior numero di domini associati all’apoptosi o al cancro (PFAM), normalmente essenziali, rispetto agli altri candidati e specie di controllo.
L’ipotesi quindi è una speculazione di come una cellula somatica cancerosa in un organismo cnidario simile a Polypodium -il loro parente più stretto noto- possa aver perso geni di controllo cellulare, sia diventata trasmissibile, si sia diffusa a un ospite (pesce o annelide) e si sia evoluta nei moderni Myxosporea attraverso perdita genica e la formazione “de novo” della pluricellularità, adattandosi a uno stile di vita parassitario.
Tuttavia, è necessario riconoscere un’importante limitazione interpretativa: la perdita genica osservata nei Myxosporea potrebbe non rappresentare una traccia diretta di un’origine neoplastica, bensì il risultato collaterale della progressiva semplificazione genetica associata all’evoluzione parassitaria di questi organismi. Se però questa ipotesi venisse smentita, resterebbero aperti interrogativi fondamentali su cosa costituisca una specie e su come cellule somatiche possano, in condizioni eccezionali, trascendere i confini del proprio ruolo per trasformarsi in entità autonome e capaci di riprodursi, mettendo in discussione le categorie classiche di individuo, ospite, parassita e perfino di vita multicellulare.
Parassiti o parte di noi? Una riflessione evolutiva
Ormai risulterà chiaro che, davanti a quell’mondo immenso chiamato vita, casi come quello dei tumori trasmissibili, ci costringono a riconsiderare radicalmente il nostro impianto categoriale. E non ci riferiamo a quello morale ma a capire quanto sia importante, come ribadiamo sempre, un’apertura alla complessità, senza cercare generalizzazioni o antropomorfizzazioni dei soggetti di studio della biologia.
Siamo abituati a concepire il cancro come un evento interno, un “tradimento” del sé biologico, un’alterazione del programma cellulare che porta alcune cellule a proliferare senza controllo ma sempre dentro i confini “ontologici” dell’organismo che le ha generate. Eppure, casi come il CTVT rovesciano questa semantica: qui il cancro esce dai confini dell’individuo, ne abbandona l’identità, e si costituisce come un’entità autonoma, effettivamente parassitica, che si propaga da corpo a corpo, da soggetto a soggetto, in un ciclo che ha ormai raggiunto gli undicimila anni di continuità genetica ininterrotta.
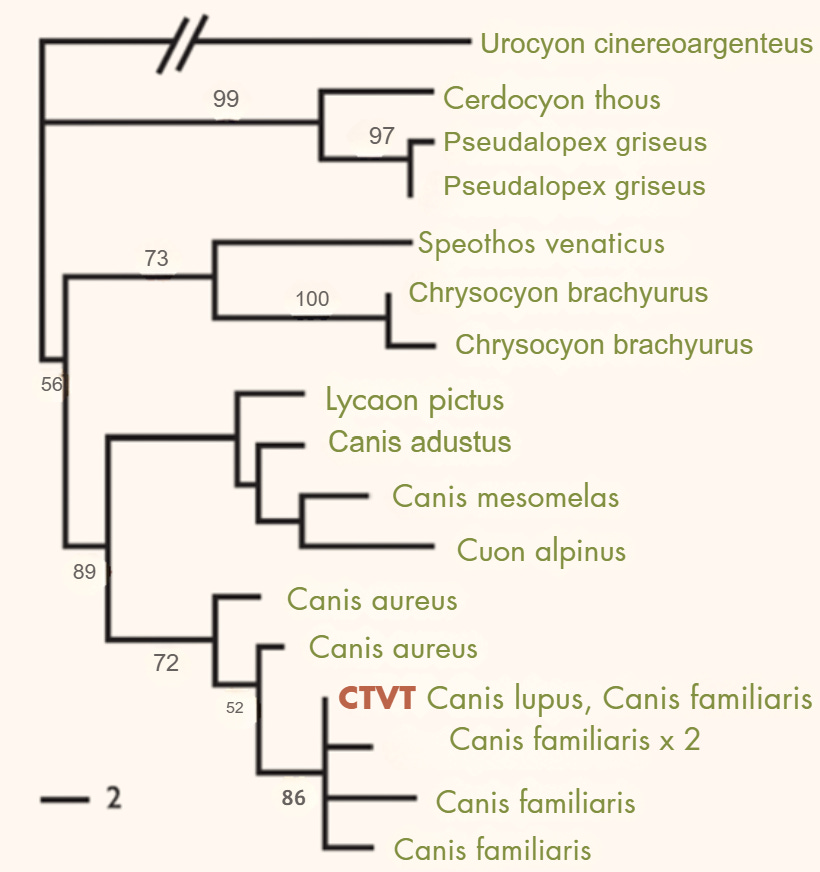
Non siamo più di fronte a un “errore interno”, ma a un vero e proprio organismo indipendente, un essere vivente che, pur derivando da cellule somatiche canine, si è progressivamente emancipato fino ad acquisire un proprio statuto biologico. Ha un suo genoma, derivato canino, simile ma distinto -soprattutto nella regolazione genetica, come nel caso dell “Eredità Invisibile”- si riproduce asessualmente, possiede capacità di adattamento evolutivo e soddisfa i criteri minimi per essere considerato vivo. Di conseguenza, è anche un esempio perfetto dell’argomento trattato nel precedente articolo “la vita come risposta”, un esempio in cui risulta chiaro come non è sufficiente sequenziare il genoma di un organismo per comprenderlo in maniera esaustiva, in cui è riduttivo riferirsi al genoma come il “libro di istruzioni della vita”:
Gli organismi viventi non sono enti che seguono un algoritmo predefinito né che eseguono un particolare set di istruzioni. Essi emergono a partire da materiali di base, dando luogo a proprietà collettive che non si possono dedurre dalla somma dei singoli componenti.
In questa luce, parlare di “tumore” diventa quasi fuorviante: da un determinato punto di vita, ciò che persiste e si tramanda nei cani randagi di mezzo mondo non è più una malattia dell’individuo, ma una nuova forma di vita, un’entità metastabile e parassitaria, simile a un protista coloniale, che ha scisso il proprio essere biologico dall’organismo originario.
Questa ambiguità ontologica destabilizza solo semanticamente le nostre tassonomie: è un tumore? È un patogeno? È un organismo? La risposta è: sì, in tutti e tre i casi -(vedasi “perspectival realism”). I tumori trasmissibili, sono tutti, a loro modo, unicum biologici che stanno al confine tra clone e colonia, tra cellule “nostre” e cellule “altre”, tra “ribelli” e “nemici”, tra “infettanti” e “attecchenti” tra tumore e parassita. Filosoficamente, esso ci costringe a rivedere il concetto stesso di identità biologica, mettendo in crisi la distinzione cartesiana tra soggetto e ambiente, tra interno e esterno, tra sé e altro (si consiglia la lettura di “What is a biological individual?”). Così come un organismo può essere concepito come una colonia di individui – le cellule- da cui scaturiscono proprietà emergenti, e come una singola formica non rappresenta un individuo pienamente autonomo, ma costituisce un elemento funzionale di un superorganismo più ampio (il formicaio), allo stesso modo, adottando un diverso punto di vista sul mondo, non è del tutto improprio considerare un tumore trasmissibile come un organismo a sé stante. A sostegno di questa prospettiva, si consideri, come nei diavoli della Tasmania, la stessa esistenza del DFTD ha creato nuove interazioni e forti pressioni selettive che stanno influenzando l’evoluzione stessa sia dell’ospite che del patogeno.
Se definiamo ‘sé’ ciò che è integrato e in comunicazione con l’organismo, allora il CTVT – che si trasmette come un’infezione e si adatta ai corpi come fossero habitat – ha definitivamente abbandonato il dominio del “sé”, divenendo “altro”. Un “altro” nato dallo stesso organismo, in una sola generazione, senza passare attraverso la riproduzione sessuata né subire variazioni temporanee di ploidia. Si delinea così una possibile nuova forma di speciazione, distinta da quelle classiche – allopatrica, peripatrica, parapatrica e simpatrica- in cui non sono barriere fisiche, geografiche o culturali a separare popolazioni e generare nuove specie, ma è l’espressione epigenetica stessa a produrre incompatibilità radicali e morfologie profondamente divergenti (arriveranno approfondimenti sulla speciazione in futuro).
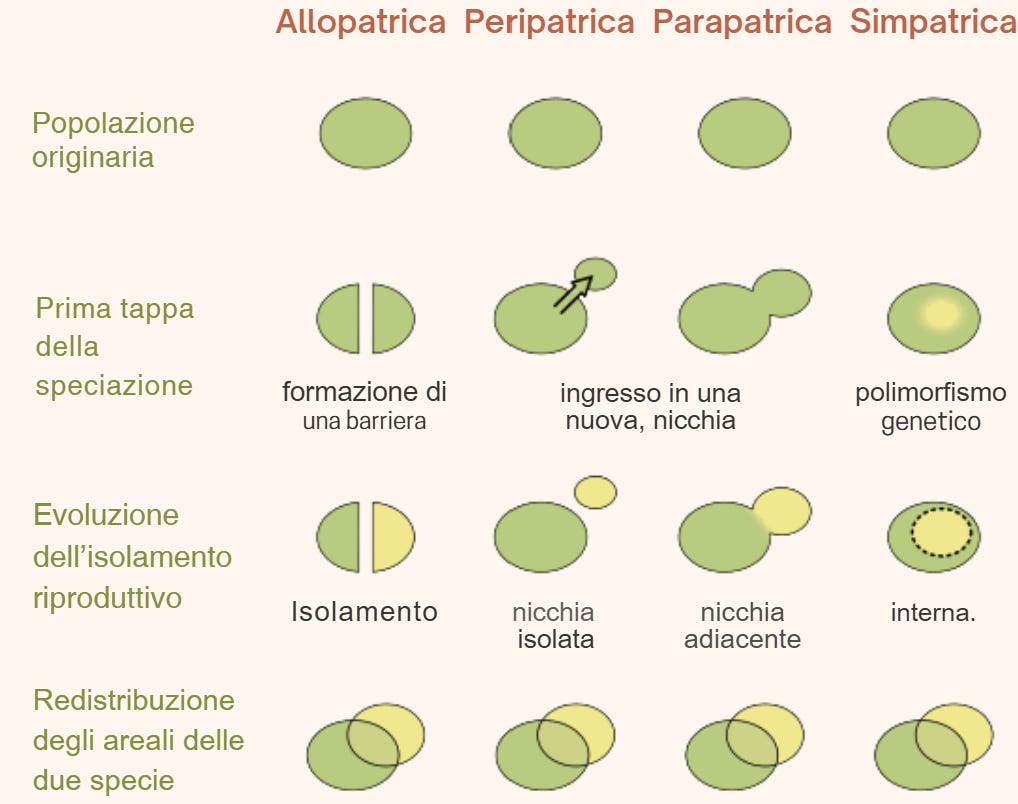
E anche laddove altri esempi di tumori trasmissibili -dalla neoplasia delle vongole alle cellule tumorali della tenia ritrovate del paziente immunodepresso- non abbiano raggiunto lo stesso livello di autonomia ecologica, la sola esistenza di tali fenomeni basta a incrinare le categorie tassonomiche statiche con cui interpretiamo la biologia. I tumori, in generale, tirando le definizioni, non sono solo devianze cellulari: possono essere considerati come processi di speciazione abortita o in atto, linee cellulari selezionate non più per il bene dell’organismo, ma per la propria sopravvivenza. Si sono ritrovati, o riscoperti parassiti obbligati senza genoma ex novo, eppure dotati di strategia evolutiva. Sono, in ultima istanza, un monito teorico sulla potenziale fluidità delle categorie vitali.
La vita ha come obiettivo primario il funzionamento, non la perfezione. Non mira all’ottimizzazione assoluta, ma si accontenta del minimo indispensabile per garantire la sopravvivenza, proliferando. In questo senso, anche una cellula con una regolazione genica profondamente alterata rispetto alla fisiologia del tessuto e dell’organismo a cui apparteneva si può ritrovare ad essere selezionata positivamente. Può acquisire autonomia, esplorando nuove modalità, forme e possibilità di essere vita. Si trova così a disporre di un genoma che, almeno teoricamente, sarebbe sufficiente a generare un organismo completo, e tuttavia resta un aggregato informe di cellule, che prolifera all’interno del corpo del proprio genitore e, molto raramente riesce a sfuggirvi. La vita infatti non si spiega solo con il genoma. Serve superare il riduzionismo genetico e puntare sull’auto-organizzazione: i geni non comandano, ma forniscono risorse, favorendo strategie vitali emergenti, flessibili e resilienti.
Future pandemie
Fortunatamente, il rischio di una pandemia di tumori trasmissibili nell’uomo resta oggi remoto: sia la trasmissione intraspecifica che quella interspecifica, come dimostrato dagli esempi visti in precedenza, richiedono condizioni altamente improbabili.
È quindi implausibile credere che una linea tumorale superi, senza un intervento umano voluto, i vincoli evolutivi che gli conferiscono la capacità di trasmettersi tra individui sani, eludendo il controllo immunitario e garantendosi un vettore efficace. Data l’etologia umana, il sesso potrebbe essere l’unico canale realistico, come nei cani, ma le dinamiche sociali che si creerebbero, unite alle pratiche igienico-sanitarie moderne, ridurrebbe ulteriormente questa già irrealistica evenienza.
In ogni caso, anche nell’ipotesi estrema -e oggi scientificamente poco sostenibile- che un tumore umano evolvesse in senso trasmissibile, la ricerca biomedica contemporanea è sufficientemente avanzata da neutralizzare rapidamente la minaccia.
La vera difficoltà, semmai, non è tecnica, ma concettuale: accettare che qualcosa che un tempo era parte integrante del nostro organismo, pur rimanendo homo sapiens, possa, attraverso un accumulo di mutazioni, emanciparsi e diventare altro da noi -autonomo, replicante, potenzialmente ostile – rappresenta una delle più profonde inquietudini evocate dal cancro, specialmente nella sua forma contagiosa. È un ribaltamento ontologico che spalanca scenari disturbanti, ma ricchi di potenziale narrativo: identità biologiche che si frammentano, confini sfumati tra sé e non-sé, nuove forme di vita che emergono dal fallimento della coesione cellulare. Un terreno fertile per la fantascienza, che da sempre esplora le zone liminari tra evoluzione, mutazione e alienità.
Conclusioni
Concludendo questo lungo percorso attraverso la biologia e la trasmissione delle neoplasie, emerge con rinnovata forza una constatazione cruciale: ogni cancro, come ogni individuo vivente, è una realtà a sé, un universo complesso e irripetibile. Ed è proprio questa intrinseca eterogeneità che continua a rappresentare la sfida più ardua per la ricerca oncologica e la ragione fondamentale per cui chiedere una “cura definitiva” universale per il cancro rimane una domanda ingenua.
I tumori trasmissibili, per quanto possano apparire come eccezioni estreme, illuminano dinamiche che, seppur in forma meno radicale, caratterizzano anche le neoplasie convenzionali. Essi ci costringono inesorabilmente a riesaminare ciò che intendiamo per “organismo”, “individuo” e persino “vita”. Non siamo più di fronte a una semplice deviazione patologica interna, ma a un fenomeno che erode le fondamenta stesse della semiotica biologica con cui interpretiamo il vivente. La cellula che “impazzisce”, che reinventa se stessa al punto da trascendere i confini dell’individuo che l’ha generata per diventare un’entità autonoma, parassitaria e capace di perpetuarsi, ci svela l’intrinseca fluidità delle categorie con cui tentiamo di ordinare il mondo naturale.
Forse, l’errore più profondo non risiede nella cellula che devia dal suo programma, ma nel nostro radicato bisogno di classificare l’ambiguità della natura in categorie rigide e rassicuranti. I tumori trasmissibili, nella loro inquietante e affascinante esistenza, ci ricordano che la vita stessa è un continuo processo di reinvenzione, capace di superare i confini che temiamo di imporle, e che la biologia, con le sue infinite sorprese, continuerà sempre a sfidare le nostre definizioni.
Grazie per essere arrivato alla fine!! se hai trovato interessante l’articolo iscriviti, commenta e condividi!
Bibliografia
Fonti primarie
- The Biology of Cancer (© Garland Science 2007).
- Hanahan D, Weinberg RA. Hallmarks of Cancer: The Next Generation. Cell. 2011
- Metzger MJ, Goff SP. A Sixth Modality of Infectious Disease: Contagious Cancer from Devils to Clams and Beyond. Sheppard DC, ed. PLoS Pathog. 2016;12(10):e1005904. doi:10.1371/journal.ppat.1005904
- Panchin AY, Aleoshin VV, Panchin YV. From tumors to species: a SCANDAL hypothesis. Biol Direct. 2019;14(1):3. doi:10.1186/s13062-019-0233-1
- Abbas – Le basi dell’immunologia – quinta edizione
- Daniel J. Nicholson, and John Dupré (eds), Everything Flows: Towards a Processual Philosophy of Biology (Oxford, 2018; online edn, Oxford Academic, 19 July 2018), https://doi.org/10.1093/oso/9780198779636.003.0001
Consigli per approfondimenti
Fonti secondarie
- Lynch M, Marinov GK. The bioenergetic costs of a gene. Proc Natl Acad Sci USA. 2015;112(51):15690-15695. doi:10.1073/pnas.1514974112
- Green J, Cairns BJ, Casabonne D, Wright FL, Reeves G, Beral V. Height and cancer incidence in the Million Women Study: prospective cohort, and meta-analysis of prospective studies of height and total cancer risk. Lancet Oncol. 2011 Aug;12(8):785-94. doi: 10.1016/S1470-2045(11)70154-1
- Black et al. NEJM – 1993
- Powell et al. J. Urology – 2010
- Cochrane systematic review – 2013
- Gigerenzer, JNCR 2009
- Salichos L, Meyerson W, Warrell J, Gerstein M. Estimating growth patterns and driver effects in tumor evolution from individual samples. Nat Commun. 2020;11(1):732. doi:10.1038/s41467-020-14407-9
- Ribatti D, Presta M, Vacca A, et al. Human Erythropoietin Induces a Pro-Angiogenic Phenotype in Cultured Endothelial Cells and Stimulates Neovascularization In Vivo. Blood. 1999;93(8):2627-2636. doi:10.1182/blood.V93.8.2627
- Shivshankar S, Patil PS, Deodhar K, Budukh AM. Epidemiology of colorectal cancer: A review with special emphasis on India. Indian J Gastroenterol. Published online February 10, 2025. doi:10.1007/s12664-024-01726-8
- Frampton D, Schwenzer H, Marino G, et al. Molecular Signatures of Regression of the Canine Transmissible Venereal Tumor. Cancer Cell. 2018;33(4):620-633.e6. doi:10.1016/j.ccell.2018.03.003
Sul contesto evolutivo
- Ujvari B, Papenfuss AT, Belov K. Transmissible cancers in an evolutionary context. Bioessays. 2016 Jul;38 Suppl 1:S14-23. doi: 10.1002/bies.201670904. PMID: 27417118.
- Tissot S, Gérard AL, Boutry J, Dujon AM, Russel T, Siddle H, Tasiemski A, Meliani J, Hamede R, Roche B, Ujvari B, Thomas F. Transmissible Cancer Evolution: The Under-Estimated Role of Environmental Factors in the “Perfect Storm” Theory. Pathogens. 2022 Feb 12;11(2):241. doi: 10.3390/pathogens11020241. PMID: 35215185; PMCID: PMC8876101.
- Reeve HK, Pfennig DW. Evolution of transmissible cancers: An adaptive, plastic strategy of selfish genetic elements? iScience. 2024 Aug 20;27(9):110740. doi: 10.1016/j.isci.2024.110740. PMID: 39286496; PMCID: PMC11402641.
- Dujon AM, Gatenby RA, Bramwell G, MacDonald N, Dohrmann E, Raven N, Schultz A, Hamede R, Gérard AL, Giraudeau M, Thomas F, Ujvari B. Transmissible Cancers in an Evolutionary Perspective. iScience. 2020 Jul 24;23(7):101269. doi: 10.1016/j.isci.2020.101269. Epub 2020 Jun 12. PMID: 32592998; PMCID: PMC7327844.
- Rebbeck CA, Thomas R, Breen M, Leroi AM, Burt A. ORIGINS AND EVOLUTION OF A TRANSMISSIBLE CANCER. Evolution. 2009;63(9):2340-2349. doi:10.1111/j.1558-5646.2009.00724.x
- Murgia C, Pritchard JK, Kim SY, Fassati A, Weiss RA. Clonal Origin and Evolution of a Transmissible Cancer. Cell. 2006;126(3):477-487. doi:10.1016/j.cell.2006.05.051
- Belov K. The role of the Major Histocompatibility Complex in the spread of contagious cancers. Mamm Genome. 2011;22(1-2):83-90. doi:10.1007/s00335-010-9294-2
Metanalisi tumori trasmissibili:
- Jones E, Cheng Y, Belov K. The origin, dynamics, and molecular evolution of transmissible cancers. Advances in Genomics and Genetics. 2015;5:317-326, doi:10.2147/AGG.S61298
- Ostrander EA, Davis BW, Ostrander GK. Transmissible Tumors: Breaking the Cancer Paradigm. Trends in Genetics. 2016;32(1):1-15. doi:10.1016/j.tig.2015.10.001
- Metzger MJ, Goff SP. A Sixth Modality of Infectious Disease: Contagious Cancer from Devils to Clams and Beyond. Sheppard DC, ed. PLoS Pathog. 2016;12(10):e1005904. doi:10.1371/journal.ppat.1005904
Origini e casi specifici di Tumori trasmissibili
- Vermooten MI. Canine transmissible venereal tumor (TVT): a review. J S Afr Vet Assoc. 1987 Sep;58(3):147-50. PMID: 3334057.
- Elizabeth P. Murchison et al.,Transmissible Dog Cancer Genome Reveals the Origin and History of an Ancient Cell Lineage.Science343,437-440(2014).DOI:10.1126/science.1247167
- Mukaratirwa S, Gruys E. Canine transmissible venereal tumour: cytogenetic origin, immunophenotype, and immunobiology. A review. Vet Q. 2003 Sep;25(3):101-11. doi: 10.1080/01652176.2003.9695151. PMID: 14535580.
- Metzger MJ, Reinisch C, Sherry J, Goff SP. Horizontal Transmission of Clonal Cancer Cells Causes Leukemia in Soft-Shell Clams. Cell. 2015;161(2):255-263. doi:10.1016/j.cell.2015.02.042
Sull’Incidenza del tumore in alcune specie
- Zachary T. Compton, Walker Mellon, Valerie K. Harris, Shawn Rupp, Diego Mallo, Stefania E. Kapsetaki, Mallory Wilmot, Ryan Kennington, Kathleen Noble, Cristina Baciu, Lucia N. Ramirez, Ashley Peraza, Brian Martins, Sushil Sudhakar, Selin Aksoy, Gabriela Furukawa, Orsolya Vincze, Mathieu Giraudeau, Elizabeth G. Duke, Simon Spiro, Edmund Flach, Hannah Davidson, Christopher I. Li, Ashley Zehnder, Trevor A. Graham, Brigid V. Troan, Tara M. Harrison, Marc Tollis, Joshua D. Schiffman, C. Athena Aktipis, Lisa M. Abegglen, Carlo C. Maley, Amy M. Boddy; Cancer Prevalence across Vertebrates. Cancer Discov 1 January 2025; 15 (1): 227–244. https://doi.org/10.1158/2159-8290.CD-24-0573
- Monikaben Padariya, Mia-Lyn Jooste, Ted Hupp, Robin Fåhraeus, Borek Vojtesek, Fritz Vollrath, Umesh Kalathiya, Konstantinos Karakostis, The Elephant Evolved p53 Isoforms that Escape MDM2-Mediated Repression and Cancer, Molecular Biology and Evolution, Volume 39, Issue 7, July 2022, msac149, doi:10.1093/molbev/msac149
- Elefanti: https://www.science.org/content/article/scienceadviser-elephants-almost-never-get-cancer-superpower-may-have-cost-them
- John D. Nagy, Erin M. Victor, Jenese H. Cropper, Why don’t all whales have cancer? A novel hypothesis resolving Peto’s paradox, Integrative and Comparative Biology, Volume 47, Issue 2, August 2007, Pages 317–328, https://doi.org/10.1093/icb/icm062
- E. Yagmur Erten, Marc Tollis, Hanna Kokko; Bird size with dinosaur-level cancer defences: can evolutionary lags during miniaturisation explain cancer robustness in birds? bioRxiv 2020.10.22.345439; doi: https://doi.org/10.1101/2020.10.22.345439
- Hua, R., Ma, YS., Yang, L. et al. Experimental evidence for cancer resistance in a bat species. Nat Commun 15, 1401 (2024). https://doi.org/10.1038/s41467-024-45767-1
- Herbert L. Ratcliffe; Incidence and Nature of Tumors in Captive Wild Mammals and Birds1. The American Journal of Cancer 1 January 1933; 17 (1): 116–135. https://doi.org/10.1158/ajc.1933.116
Articoli sui casi umani
- Gärtner HV, Seidl C, Luckenbach C, et al. Genetic Analysis of a Sarcoma Accidentally Transplanted from a Patient to a Surgeon. N Engl J Med. 1996;335(20):1494-1497. doi:10.1056/NEJM199611143352004
- JOUR; Needle-Stick Transmission of Human Colonic Adenocarcinoma – 1986/12/04 – doi: 10.1056/NEJM198612043152314 – New England Journal of Medicine
- JOUR- Muehlenbachs Atis et all. Malignant Transformation of Hymenolepis nana in a Human Host – doi: 10.1056/NEJMoa1505892 – New England Journal of Medicine
- American J Transplantation – 2018 – Matser – Transmission of breast cancer by a single multiorgan donor to 4 transplant recipients
- Strong LC. ON THE OCCURRENCE OF MUTATIONS WITHIN TRANSPLANTABLE NEOPLASMS. Genetics. 1926;11(3):294-303. doi:10.1093/genetics/11.3.294
- Fassati A, Mitchison NA. Testing the theory of immune selection in cancers that break the rules of transplantation. Cancer Immunol Immunother. 2010;59(5):643-651. doi:10.1007/s00262-009-0809-1
Video YT consigliati, correlati agli argomenti
- Umberto il sorcio, DA TUMORE A SPECIE – Un’ipotesi SCANDALosa
- Michael Levin’s Academic Conten, Coming Home: From Cells to Societies
- Entropyforlife, Quando il Cancro è Trasmissibile
- Entropyforlife, Animali che non si ammalano di Cancro? perché?
- Subanima, You’ve Been Lied To About Genetics
- Subanima, Organisms Are Not Made Of Atoms
Glossario:
Normalità: In biologia e medicina indica una condizione che rientra nei limiti fisiologici tipici della specie, cioè compatibile con il funzionamento sano e regolare dell’organismo. Si riferisce a parametri, strutture o funzioni che si collocano nella media o in un intervallo considerato non patologico. In altre parole, è ciò che rappresenta la norma in assenza di alterazioni o malattie. Non ci sono connotati morali.
Genoma: l’insieme completo del materiale genetico di un organismo, è costituito da lunghissime sequenze di DNA, altamente dispersive: solo una piccola frazione di esse – i cosiddetti geni -contiene le istruzioni per la sintesi di molecole funzionali, le proteine (art. precedente). Il resto, pur non traducendosi direttamente in prodotti, svolge ruoli regolatori, strutturali o è di funzione ancora non del tutto chiarita. In questo contesto, i geni non “fanno cose” in modo meccanico o isolato, ma interagiscono in reti complesse, modulando le attività cellulari in risposta a segnali interni ed esterni.
Codice genetico: è il sistema con cui le informazioni contenute nel genoma vengono “lette” e tradotte per costruire le proteine, che sono fondamentali per il funzionamento e la struttura di tutte le cellule viventi. Il DNA è composto da una lunga sequenza di quattro basi azotate: adenina (A), timina (T), citosina (C) e guanina (G). Queste basi si combinano in gruppi di tre, chiamati triplette o codoni, e ogni tripletta corrisponde a un amminoacido specifico, cioè uno dei “mattoni” che compongono le proteine. L’insieme delle triplette contenute in un gene fornisce quindi le istruzioni per costruire una determinata proteina, in un ordine preciso. Quando si parla di mutazioni, si fa riferimento proprio a cambiamenti nella sequenza di queste basi. Se la sequenza cambia, può cambiare il significato di una o più triplette, e quindi anche il tipo o la funzione della proteina prodotta. In alcuni casi la proteina risultante funziona male o non viene prodotta affatto, e questo può avere conseguenze anche molto gravi per l’organismo.
Mutazioni: sono cambiamenti permanenti nella sequenza del DNA di un organismo. Si tratta di alterazioni che possono interessare una sola “lettera” del codice genetico oppure tratti più lunghi, come interi geni o parti di cromosomi. Queste modifiche possono avvenire spontaneamente, per esempio durante la duplicazione del DNA, oppure essere causate da fattori esterni, come radiazioni, sostanze chimiche o virus, che vengono chiamati mutageni. Dal punto di vista degli effetti, le mutazioni possono avere conseguenze molto diverse. In alcuni casi non producono alcun effetto evidente e vengono definite neutre. In altri casi possono addirittura risultare vantaggiose, contribuendo all’adattamento evolutivo di una specie. Tuttavia, ci sono anche mutazioni che alterano il funzionamento normale delle cellule e possono portare a malattie, come accade nel caso di molti tumori. Le mutazioni possono verificarsi nelle cellule somatiche, cioè quelle che compongono i tessuti e gli organi del corpo, e in questo caso riguardano solo l’individuo in cui si manifestano. Se invece avvengono nelle cellule germinali, quelle destinate alla riproduzione, possono essere trasmesse ai figli.
Fitness: in biologia evolutiva si riferisce alla capacità di un organismo di sopravvivere, riprodursi e trasmettere i suoi geni alla generazione successiva. Maggiore è la sua fitness, maggiore è la probabilità che i suoi tratti genetici vengano trasmessi alla discendenza, influenzando l’evoluzione della specie.
Pressione selettiva in ambito oncologico: In ambito oncologico, la pressione selettiva si riferisce all’insieme dei fattori ambientali, immunitari e terapeutici che influenzano la sopravvivenza e la proliferazione delle cellule tumorali. Questi fattori agiscono come forze selettive, favorendo la crescita di cloni cellulari con caratteristiche vantaggiose, come la resistenza ai farmaci o la capacità di eludere il sistema immunitario. Questo processo contribuisce all’evoluzione del tumore, rendendolo più aggressivo e difficile da trattare.Ad esempio, durante la terapia antitumorale, le cellule sensibili al trattamento possono essere eliminate, mentre quelle resistenti sopravvivono e proliferano, portando a recidive più difficili da gestire. Analogamente, il sistema immunitario può esercitare una pressione selettiva eliminando le cellule tumorali più immunogeniche, permettendo la sopravvivenza di quelle meno riconoscibili.
Ciclo cellulare: Il ciclo cellulare è il processo attraverso cui una cellula cresce, duplica il proprio DNA e si divide in due cellule figlie. Si articola in fasi precise: G1 (crescita), S (replicazione del DNA), G2 (preparazione alla divisione) e M (mitosi o divisione vera e propria). È regolato da complessi di cicline e CDK e controllato da checkpoint che assicurano che tutto proceda correttamente. Divisione delle popolazioni cellulari in stabili, labili e perenni
Collo di bottiglia: drastico e improvviso calo nella dimensione di una popolazione che riduce significativamente la variabilità genetica. Questo evento, causato da catastrofi naturali, epidemie o azioni antropiche, porta a un campione ristretto e non rappresentativo del pool genico originario, amplificando gli effetti della deriva genetica e aumentando la probabilità di fissazione di alleli deleteri.
Pompe ABC (ATP-Binding Cassette): sono proteine transmembrana che, utilizzando l’energia derivata dall’idrolisi dell’ATP, trasportano attivamente una vasta gamma di sostanze – come ioni, metaboliti, farmaci e lipidi – attraverso le membrane cellulari, svolgendo un ruolo cruciale nella detossificazione, nell’assorbimento intestinale e nella protezione di barriere fisiologiche come quella ematoencefalica.
Locus genico: è la posizione specifica di un gene o di una sequenza di DNA su un cromosoma.
Allele: è una delle diverse forme alternative di un gene che possono trovarsi in un determinato locus. Gli alleli possono differire per sequenze nucleotidiche e influenzare il fenotipo.
Polimorfismo: è la presenza di due o più varianti (alleli) di un gene in una popolazione, ciascuna con una frequenza significativa (tipicamente >1%).
Comportamento epizootico: malattia si diffonde rapidamente e colpisce un gran numero di animali in una popolazione in un periodo limitato di tempo, analogamente a un’epidemia negli esseri umani. Indica quindi un picco anomalo di incidenza.
Enzootico: al contrario indica una malattia costantemente presente in una popolazione animale, con livelli stabili nel tempo, simile all’endemico negli esseri umani.
Orologio molecolare: È un metodo che utilizza il tasso di accumulo delle mutazioni genetiche, o di inserzioni/delezioni di trasposoni o di virus nel genoma, per stimare il tempo trascorso dalla divergenza evolutiva tra due specie. Si basa sull’ipotesi che le mutazioni neutre si accumulino a un ritmo approssimativamente costante nel tempo. Ovviamente si sequenziano zone non proteogeniche o funzionali del genoma poiché queste, tolte mutazioni sinonime, possono essere soggette selezione naturale e quindi predisposte ad essere conservate. Restano comunque, per quanto validi, modelli statistici.
Confronto dell’identità di sequenza: tecnica che, mettendo a confronto due sequenze proteiche di individui o specie differenti, permette di stimare, in base al luogo delle mutazioni, non solo la distanza evolutiva, ma anche quali sono i domini funzionali o le zone indispensabili di una proteina.
caratteristiche fondamentali dei geni e delle proteine del complesso maggiore di istocompatibilità (MHC): I geni MHC sono altamente polimorfici e codominanti, permettendo l’espressione simultanea di più alleli ereditati da entrambi i genitori – ne sono un’eccezione i diavoli della Tasmania. Questa variabilità garantisce che nella popolazione vi siano individui capaci di riconoscere un’ampia gamma di antigeni microbici, rappresentando un vantaggio evolutivo. Le molecole MHC di classe I sono espresse da tutte le cellule nucleate e presentano peptidi da proteine citosoliche, mentre quelle di classe II sono espresse da cellule presentanti l’antigene (APC) e presentano peptidi derivati da proteine endocitate. Ogni molecola MHC lega un solo peptide alla volta, ma ha ampia specificità. La stabilità delle molecole MHC sulla membrana dipende dalla presenza del peptide legato. Le MHC non distinguono tra antigeni self ed estranei, ma l’autoimmunità è evitata grazie all’eliminazione dei linfociti T autoreattivi. Infine, il sistema MHC spiega anche fenomeni come il rigetto dei trapianti, dovuto al riconoscimento delle molecole MHC non self da parte del sistema immunitario del ricevente.